APG分類の方法論的問題――系統樹から分類階級をどう決めるのか
APG分類の根本的問題――進化史を一本の系統樹で表せるのかでは、進化の歴史は網目(ネットワーク)になりうるのに、分類は入れ子(ツリー)でしか表せないという、構造上の矛盾を見ました。このページでは、仮に系統樹が一本に定まったとしても残る問題を扱います。それは、系統樹から分類をつくる手順そのものの問題です。
系統樹が教えてくれるのは、枝がどの順序で分かれたかです。どの枝を「科」と呼び、どの枝を「目」と呼ぶか、あるいは「属」とするかは、系統樹だけでは決まりません。そこには、系統樹とは別の判断が入ります。APG V の論文自身も、系統樹を切り分ける方法は一通りではなく、どの分類を採るかは、これまでも分類学者の考え方に左右されてきたと述べています(Angiosperm Phylogeny Group, 2026)。
このページでは、その判断がどのような基準で行われ、どこに限界があるのかを、次の順に検討します。科・目の範囲を決める基準、分類階級の一貫性、目・科の基準を属・種のレベルに延ばせるのか、系統の推定と分類上の判断の区別、形態による識別と分子系統に基づく分類の関係、不確実な系統関係の扱い、そして既存の研究を統合して証拠を評価する方法です。
科・目の範囲を設定する基準
APGの科と目は、どのような基準で区切られているのでしょうか。APG V の論文は、一般原則として単系統性と安定性を挙げ、運用上の指針として、小さな科の統合や、不確実性の扱いを示しています(Angiosperm Phylogeny Group, 2026)。このうち、分類の範囲を直接決めるのは、単系統性ではありません。単系統であることは、ある群を分類群として認めるための必要条件ですが、系統樹のどの枝も単系統です。したがって、単系統性だけでは、どの枝を科にするかは決まりません。
実際、APGの科と目の枠組みは、もともと系統樹だけから導かれたものではありません。APG(1998)は、当時の形態に基づく分類で認められていた目や科を、安定性と親しみやすさのために引き継ぎました。ただし、伝統的な範囲のままではなかったとされています。さらに、目の数をできるだけ少なくして体系を簡単に保つという意識的な方針がとられ、単子葉類の目と科の配置は Dahlgren et al.(1985)に従い、被子植物全体の構成も Dahlgren(1975)の体系に似ていたと、論文は述べています(Angiosperm Phylogeny Group, 2026)。Dahlgren(1975)は約30の上目を認めており、その数と名称は、APG(1998)の40の目と近いものでした。一方で論文は、APGの目の多くはDNAの結果に基づいてつくられた、APG独自のものだとも述べています。つまり、科は伝統的な概念を多く引き継ぎ、目はDNAによって新しくまとめられたものが多いということです。
範囲の決め方には、利用者の事情も大きく関わってきました。APG II(2003)では、科の範囲を広くとるか狭くとるかを利用者が選べる、括弧付きの方式が導入されました。ところがAPG III(2009)で、この方式は廃止されました。分類学の専門家ではない利用者から、自分では判断できないので選択肢をなくしてほしいという声が多く寄せられたためです。ほとんどの場合、広い範囲の科が採用され、科の数は457から413に減りました(Angiosperm Phylogeny Group, 2026)。論文は、科の数の減少がとくにはっきりしたのは、この括弧付き方式をやめたときだと明記しています。つまり、科の数の変動には、新しいデータによる発見だけでなく、運用上の選択が含まれていました。
教育の都合も、範囲を決める理由に挙がっています。APG V の論文は、植物分類学の教科書が扱うのは、APGの科のおよそ4分の1(多くても100科ほど)にすぎないこと、そのため科を細かく分けすぎると学生や一般の利用者が把握しきれなくなることを指摘しています。その例が Boraginales です。Luebert et al.(2016)は、これを最大11科に分ける案を示しましたが、非専門家を含むオンライン調査(Christenhusz et al., 2015)では、教育上は1科にまとめる意見が好まれました。APG Vは、Boraginales を1科のまま維持しました(Angiosperm Phylogeny Group, 2026)。
小さな科の統合も、同じ性質の判断です。単属の科や単科の目が別の科や目の姉妹群であり、共通の特徴があれば、まとめることがあります(Backlund & Bremer, 1998)。重複を減らして、体系の情報量を高めるためです。単一の属や種だけを含む上位分類群は、Corner(1981)が「pseudon」と呼んだもので、避けるのが望ましいとされます。しかし論文は、この統合をいつ行うかについての一般的な原則は「実際には立てられない」と明言しています。個々の事例が固有であり、歴史的な経緯、その群についての知識、専門家の助言、診断形質などの総合で決めるからです(Angiosperm Phylogeny Group, 2026)。
こうしたやり方は、実務としては筋が通っています。論文も、分類は取り決めであり、APG分類もその例外ではないと述べています。ただ、その結果として、科の範囲は自然界が決めた量ではなく、判断の積み重ねによる量になります。しかも、安定性の原則は、すでに単系統とされた科や目を分割しないと定める一方で、小さな科を統合することは認めています。したがって、変更は統合の方向に偏りやすくなります。実際、科の数は、APG(1998)の462からAPG Vの407へと、全体として減ってきました(APG IIIの413からAPG IVの416へは、わずかに増えています)。反対に目の数は、単科目が認められたこともあって、APG IVの64からAPG Vの66へと増えています。「APGが示す科の数」は、系統の複雑さの尺度ではなく、取り決めの履歴を反映した数字として読む必要があります。
分類階級の一貫性
APGは、科や目という「階級」を使っています。では、同じ階級に置かれた分類群は、互いに比べられる単位になっているのでしょうか。
階級を揃える方法として、分岐した年代を使う案があります。ある年代の幅に入る枝を同じ階級にする「時間による帯(temporal banding)」の考えで、Avise & Mitchell(2007)、Vences et al.(2013)、Kraichak et al.(2017)などが、一定の場合に支持してきました。APG V の論文は、この方法を採りません。論文が挙げる理由は3つです。被子植物の科は、さまざまな時期に生じたことがわかっている(Wikström et al., 2001; Magallón et al., 2015; Zuntini et al., 2024)。年代をそろえようとすれば、APGの分類は大規模で混乱した変更を強いられる。そして、年代の推定は分子年代測定の方法によって大きく異なり、同じ科でも結果が大きく違うことがある、というものです(Magallón et al., 2015; Lücking, 2019; Angiosperm Phylogeny Group, 2026)。
この判断には合理性があります。ただし、その帰結は明確です。APGの「科」は、年代でも、種数でも、形態的な多様性でも、互いに比べられる単位ではありません。1属1種の Amborellaceae も、約1800種からなる Boraginaceae s.l.(論文の記述による)も、数万種を含む大きな科も、同じ「科」です。「同じ階級だから同程度の分化を表す」と読むことはできません。階級は、利用者が使いやすいように並べるための取り決めであり、進化の量を測る物差しではありません。
階級の使い方は、APGの中でも一様ではありません。目と科は正式な階級として扱われますが、その上のまとまり、たとえば、マメ群(fabids)、アオイ群(malvids)、キク群(asterids)、superrosids などは、階級を持たない非公式の名前です。APG Vは、Ceratophyllales を含む群を、真正双子葉類に含めず、非公式の「ceratophyllids」としました。科や目の位置が定まらない場合は、「未配置(unplaced)」として扱います。一方、科より下の亜科や族は、APGの範囲に含まれていません。論文は、亜科や亜目の分類を、APGの目・科と対立するのではなく補うものとして、各分野の専門家が整備していく方法を示しています。Asteraceae、Orchidaceae、Fabaceae、Poaceae などの大きな科では、亜科の大半が単系統であることが、大規模な核遺伝子の解析で支持されています(Angiosperm Phylogeny Group, 2026)。
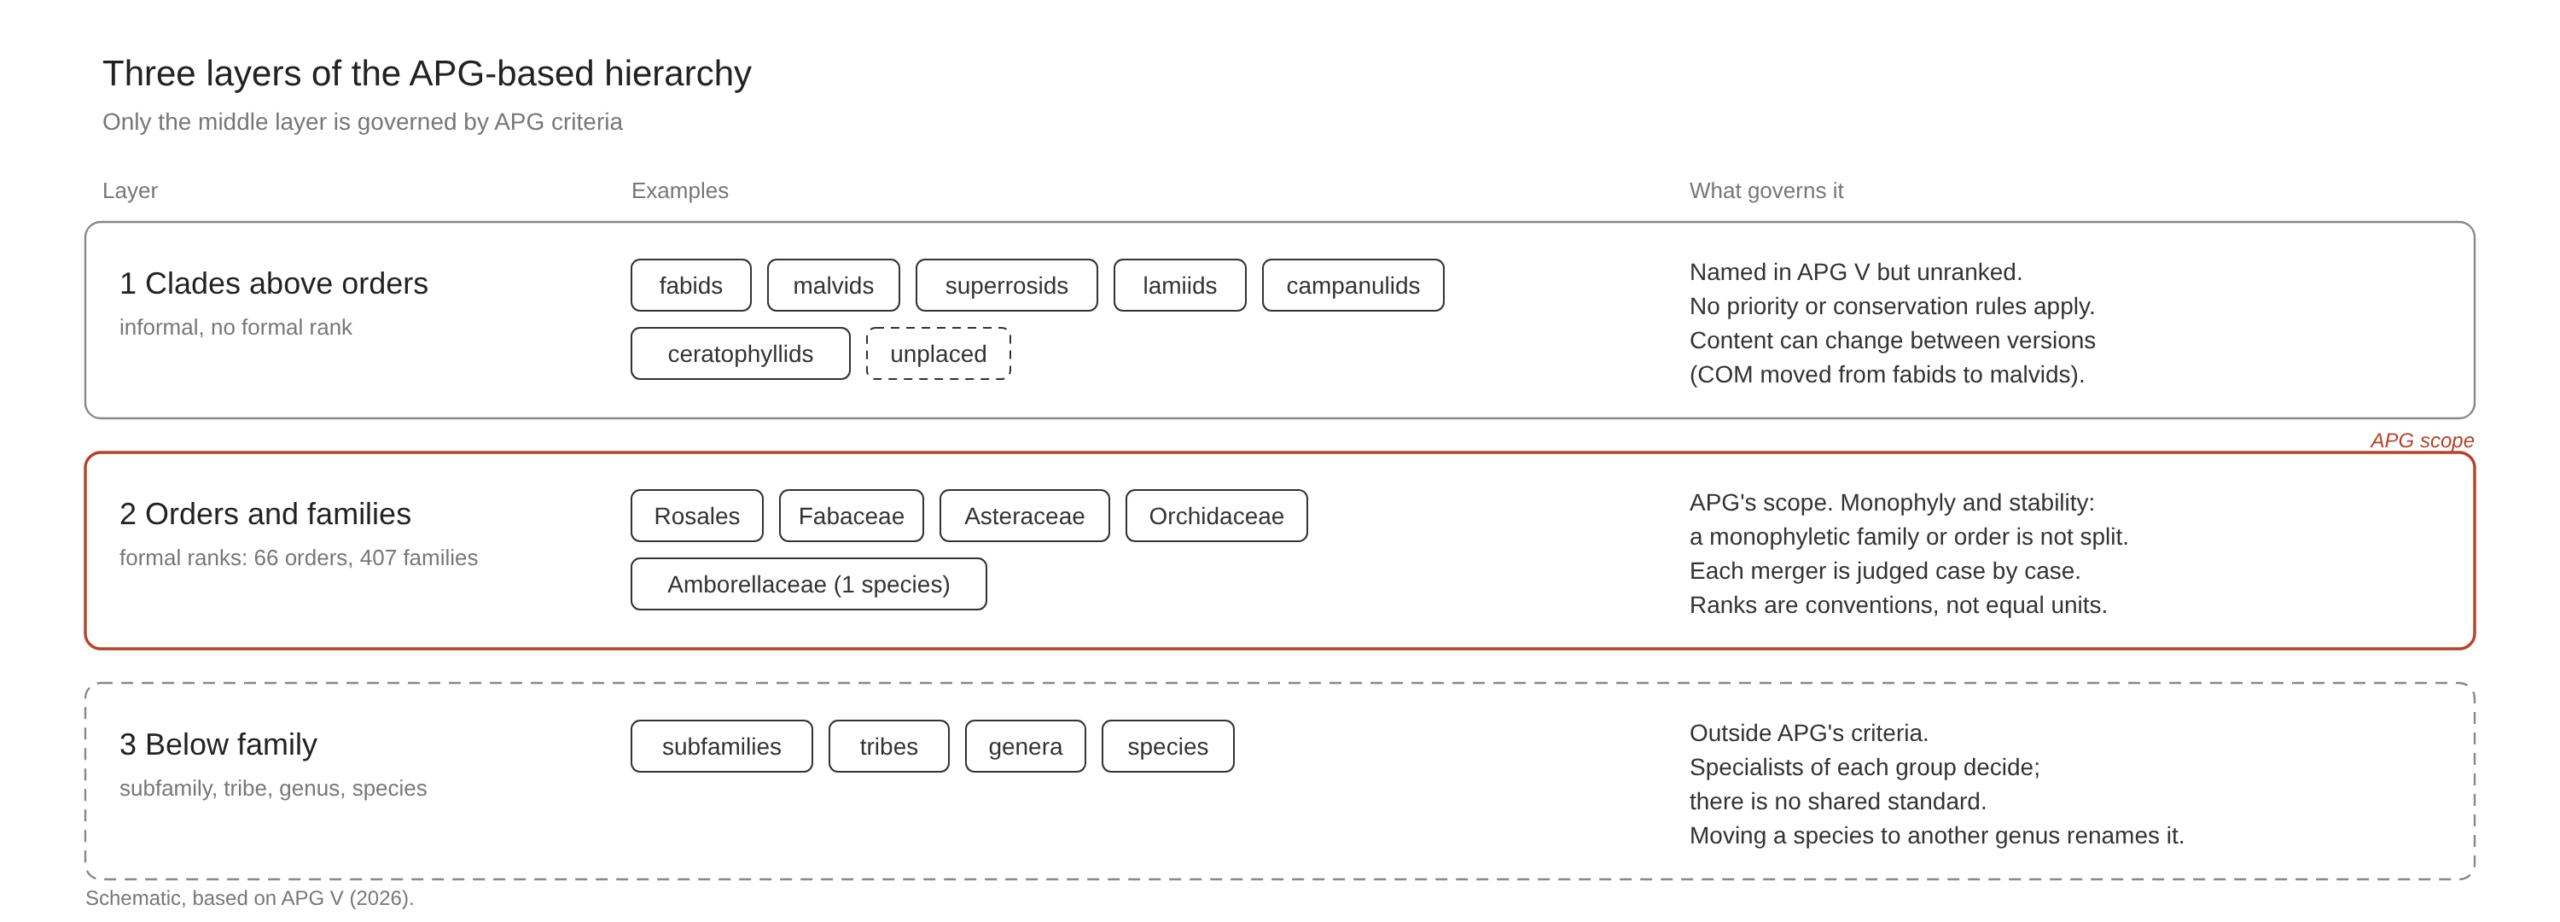
図4 APG体系の三層構造(模式図)。APGの基準が及ぶのは、真ん中の目・科の層だけである。上の層(階級のない非公式なまとまり)には、命名規約による先取権や保存の仕組みが働かない。下の層(亜科・族・属・種)には、APGに共通の基準がなく、それぞれの分野の専門家が決めている。Angiosperm Phylogeny Group(2026)に基づく。
つまり、APGの体系は、完全な階層ではありません。正式な階級を持つ目・科、階級のない上位の群、そして別の研究者が整備する下位の階級という、性質の異なる層が重なっています。これは、役割分担としては合理的です。ただし、APG II、III、IVの論文題名がそろって「目と科のための分類」とうたっていることを踏まえると、APGが責任を持つ範囲は、もともと目と科に限られていたことになります。その範囲の外側、すなわち、属や種の階級については、APGが一貫性を保証しているわけではありません。
属・種レベルへの延長――目・科の基準は属に使えるのか
APGが目・科のために整えた基準は、属や種の階級にそのまま延ばせるのでしょうか。
まず確認しておくと、APG V自身は、属の移動を勧めているわけではありません。論文が扱うのは目と科、およびその上のまとまりであり、属の範囲を決める基準は示していません。属の範囲の決め方は、APG V の論文にあるとおり、分類学者の考え方と方法に左右される領域です。ところが、「APG体系」という名前が広く権威を持つようになり、属の移動でも、「分子データでそう出たから」という理由が、APGの名のもとに通用するようになっています。
この延長には、少なくとも4つの無理があります。
1つ目は、単系統性だけでは属の範囲が決まらないことです。ある属が別の属の内部に入れ子になって見つかったとき、単系統に直す方法は2つあります。入れ子になった属を、中に入っている側の属に含めてしまう方法(統合)と、入れ子の外側の属を分割して、それぞれを別の属とする方法です。どちらを選んでも単系統性は満たされます。どちらを選ぶかは、形態で見分けやすいか、属の大きさがどうなるか、名前の変更が少なくて済むか、といった別の基準で決まります。科のレベルでは、APG V が科の統合を「それぞれの事例が固有であり、歴史的経緯、その群についての知識、専門家の助言、診断形質の有無の組み合わせで決める」と述べています。つまり、APG自身の科レベルの判断でさえ、系統樹だけで機械的に決めているわけではありません。属のレベルで、DNAの系統樹だけを理由に移動させるとすれば、それはAPGが科のレベルで行っている手順より、むしろ根拠が薄いことになります。
2つ目は、名前に及ぼす影響の違いです。科や目の変更は、種の学名を変えません。ところが、種を別の属に移せば、属名が学名の一部であるため、種の学名そのものが変わります。国際植物命名規約のもとでは、新しい組み合わせの発表や、異名の整理が必要になります。APG V の論文も、DNAを分類に取り入れたことが、商業的に重要な植物の名前や科を変えたこと、その結果として、園芸家や栽培者に現実の経済的な負担が生じたことを指摘しています(Valleau, 2004; Mabberley, 2017; Angiosperm Phylogeny Group, 2026)。この負担は、科の変更よりも、種の学名が変わる属の変更のほうが、はるかに直接的です。APG V の論文は、安定性を重視する理由として、こうした影響を挙げています。そして、安定性の原則は「単系統が示された科・目は分割しない」と、科と目について定められたものです。属には、同じ原則がありません。
3つ目は、データの条件です。第1ページで見たとおり、APGが扱う深い分岐では、遺伝子系統樹の不一致が影響する分類階級は、一部にとどまります(Angiosperm Phylogeny Group, 2026)。一方、属や種のレベルは、分岐が新しいために、不完全系統選別(ILS)や交雑・遺伝子浸透の影響が大きくなります(Mallet et al., 2016)。遺伝子系統樹で単系統でも、種が単系統とは限りません(Funk & Omland, 2003; Knowles & Carstens, 2007)。さらに、葉緑体ゲノムは1つの遺伝単位として受け継がれ、交雑やILSの痕跡を覆い隠してしまいます(Angiosperm Phylogeny Group, 2026)。遺伝子数本、あるいは葉緑体DNAの限られた領域だけで属の境界を動かすことは、この問題を最も受けやすい組み合わせです。
4つ目は、成功の評価の持ち込み方です。科のレベルでは、ニューカレドニアの被子植物の科の分類は、APG IIIが適用された2012年以降、変更がゼロになったと報告されています(Gotty & Pillon, 2025)。これはAPGが目・科で安定した枠組みを提供した証拠です。しかし、その安定は、目・科という階級の特性(深い分岐、多数の遺伝子系統樹で同じ結果になりやすいこと)と、安定性を優先する運用の両方に支えられたものです。同じ安定が、属のレベルでも成り立つとは限りません。目・科での成功が、そのまま属の変更を正当化する根拠になるわけではないのです。
したがって、属の移動は、本来、より多くの遺伝子、核ゲノムのデータ、形態、生態、分布を組み合わせ、統合と分割のどちらがより適切かを検討したうえで決めるものです。この点は、第1ページで挙げた事例(Bruyns et al., 2014 と Feldberg et al., 2009)を、次のように読み直すこともできます。いずれの事例でも、変更が誤りだったとは言えません。しかし、単系統性という条件を満たすことが、そのまま「属を移す理由」になりうるのか、という問いが残ります。
系統推定と分類上の判断の区別
分類をつくる作業は、2つの段階に分けられます。系統関係を推定する段階と、その結果を分類の名前と階級に落とし込む段階です。前者は、データと解析によって、ある程度の検証ができます。後者は、取り決めであり、判断です。APG V の論文も、分類は取り決めであり、APG分類もその例外ではない、と述べています(Angiosperm Phylogeny Group, 2026)。
APGの手順には、この2つの段階が重なっている部分があります。たとえば、葉緑体の系統樹と核の系統樹が食い違うときの方針です。論文は、曖昧さがなく十分に支持された大規模な核の系統樹を、分類のうえで優先すると定めています。また、核遺伝子の系統樹と食い違う葉緑体の解析での位置は、単純に捨ててよいとも述べています。これは、系統の推定結果ではなく、分類をつくるときの運用ルールです。同じく、「50%を超える遺伝子系統樹で一致する結果が得られない関係は、不確実なものとしてポリトミーで示す」という基準も、系統の歴史から導かれる境界ではなく、判断の線引きです(Angiosperm Phylogeny Group, 2026)。
また、論文は、分類をつくるだけならば、不一致の原因を理解することは必ずしも必要ではないとも述べています。実務としては正直な書き方ですが、分類が、系統の歴史を理解した結果ではなく、系統樹の見かけの結果を整理したものになりうることも意味します。
判断が系統の推定の上に重なっている様子がよくわかる例が、Piperales の Hydnoraceae です。Hydnoraceae は、これまでの多くの解析で、広い範囲の Aristolochiaceae の内部に入れ子になることが示されてきました(Jost et al., 2021)。ところが Helmstetter et al.(2025)のコアレッセント法による解析では、Hydnoraceae は Piperales の残りすべての姉妹群という、別の位置が好まれました。ただし、遺伝子系統樹の不一致は大きく、35%の遺伝子系統樹は Aristolochiaceae に含まれる位置を支持しており、連結解析ではAPG IVの扱いが支持されました。そのうえで、Hydnoraceae の2属が、Aristolochia や Asarum と、三数性の花、1列の花被、下位子房、雄しべと花柱の合着(ずい柱)という診断形質を共有しているため、APG Vは、Hydnoraceae を引き続き Aristolochiaceae に含めました(Angiosperm Phylogeny Group, 2026)。この決定は、解析手法によって結果が分かれる系統の推定を、形態と安定性を考慮して、分類の判断に変換したものです。
このように、APG分類は、系統の推定結果と、それに加えられた判断の合成物です。ところが、「APGによれば」という言い方は、しばしば両者を区別せずに使われます。第1ページで指摘した、APGの権威が独り歩きする問題は、この区別が見えにくくなることと表裏一体です。分類に、系統の推定の確からしさと、取り決めによる判断が混ざっていることを、利用者が見分けられる形で示すことが必要です。
形態的な識別可能性と分子系統学的分類
分子系統学が、形態に基づく従来の分類の問題点を明らかにしたことは確かです。形態に基づく科が、側系統や多系統であることは、APGの初版の時点ですでに指摘されていました(Angiosperm Phylogeny Group, 1998; Judd et al., 1994)。形態的な類似が、収斂進化によって生じることも、よく知られています。単系統という基準は、そうした見かけの類似に引きずられない点で、大きな進歩でした。
しかし、単系統であることと、見分けられることは別の問題です。APG V の論文は、この点をはっきり認めています。Chase et al.(2009)は、広い範囲で認められたAsparagales の科のなかには、形態の共有派生形質がないものがあることを認めました。同時に、論文は、Chase et al. が提案した亜科の多くにも、DNA以外の共有派生形質は見つからないと指摘しています。その結果、科も亜科も、容易には見分けられないということになります。DNAの結果によって、形態が大きく異なる属が加わったことで、形態による範囲の説明が難しくなった科の例として、Acanthaceae、Gesneriaceae、Lamiaceae、Scrophulariaceae が挙げられています。また、DNA以外の共有派生形質を探すことは、Asparagales や Lamiales などでは「差し迫った課題」とされています。さらに、植物化学や花の発生過程といったDNA以外の共有派生形質があっても、一般的な科の同定には役に立たないことがあるとも述べられています(Angiosperm Phylogeny Group, 2026)。
新たに統合された科にも、同じ問題があります。Gesneriaceae に Calceolariaceae と Peltantheraceae を含めた例では、対になって花をつける集散花序が、Calceolariaceae と大半の Gesneriaceae に共通するものの、Peltanthera にはなく、Gesneriaceae のなかにも例外があります。そのため、3者を統合しても、形態の多様性は新たには加わらない、と説明されています。ただし、この説明は、統合によって見分けやすくなるという意味ではありません。論文自身が、Asparagales や Lamiales などで新たに認められた科の一部に、DNA以外の共有派生形質がまだ見つかっていないことを認めています。APG Vの調査でも、意見の相違が集中したのは、Boraginales と、この Gesneriaceae・Calceolariaceae・Peltantheraceae の扱いでした。
この問題は、分類が果たす2つの役割から考えるとわかりやすくなります。分類は、系統の歴史を反映する役割と、人が生物を見分け、名前で伝え合うための道具としての役割を持っています。単系統性は前者を満たしますが、後者を保証しません。標本庫での整理、植物誌の執筆、野外での同定、法規制や取引での扱いは、いずれも、配列を読まなくても識別できることを前提にしています。DNAでしか見分けられない群が増えるほど、分類は、専門の設備を持つ人だけが確認できるものになります。
もちろん、これは分子系統を否定する議論ではありません。形態と分子のどちらかを選ぶ問題ではなく、群を認める基準に、単系統性に加えて、識別できることを置くかどうかという問題です。APG V の論文は、小さな科の統合の判断に診断形質の有無を挙げています。これは、実際の運用で、識別できることを考慮していることを示しています。ただし、それは明文化された基準ではなく、事例ごとの判断にとどまっています。
不確実な系統関係の扱い
系統関係には、確からしさの度合いがあります。分類は、その度合いを、名前と階級の上でどう示すのでしょうか。APG V は、不確実性を示すために、いくつかの手段を使っています。
1つは、要約系統樹(Fig. 1)で、ポリトミー(多分岐)として示す方法です。核遺伝子の系統樹の不一致が大きく、50%を超える遺伝子系統樹で一致する結果が得られない場合や、解析手法によって結果が変わる場合に、関係を確定しません。2つ目は、「未配置(unplaced)」にする方法です。位置が定まらない科や目を、目や大きな群に対して、位置を決めずに扱います。APG Vでは、Caryophyllales と Santalales が、superrosids にも superasterids にも含められず、Huaceae は目に未配置の科とされました。3つ目は、位置不明の分類群(incertae sedis)として残す方法で、APG IVの7つから、APG Vでは4つに減りました。4つ目は、問題のある配置を認めたうえで維持する方法です。Dasypogonaceae は、核遺伝子の解析で遺伝子系統樹間の不一致が大きいものの、Arecales に置きつつ、問題のある配置であると明記されています。また、目の内部の科どうしの関係は今後変わりうるとして、付録Aでは科を目ごとにアルファベット順に並べています(Angiosperm Phylogeny Group, 2026)。
これらは、不確実性を隠さずに示す工夫として評価できます。しかし、いくつかの限界があります。
第一に、これらの手段が使えるのは、目や科の位置が不確かな場合に限られます。分類は、ある科にある属を入れるか入れないかという二者択一であり、「遺伝子系統樹の35%はこちらを支持する」という確からしさの度合いを、名前に載せる手段はありません。Hydnoraceae のように、解析手法によって結果が分かれる群も、利用者が目にするのは、「Aristolochiaceae に含める」という結論だけです。
第二に、単系統性の原則との関係です。単系統性は、APGで最も重要な原則とされてきました。ところが、Dioscoreales では、位置の不確かさと、遺伝子の大きな変化による長枝誘引の問題から、非単系統になる可能性の高い科を含む APG IV の枠組みが、そのまま維持されました。Afrothismiaceae、Taccaceae、Thismiaceae は、引用符付きの「Dioscoreaceae」に暫定的に含められています。引用符が示すのは、単系統でない可能性です。つまり、確からしさが十分でないとき、単系統性の原則は一時的に脇に置かれます。これは実務としては妥当な判断ですが、原則が運用では絶対でないことを示しています。
第三に、不確実性が大きいのは、特定の種類の分類群です。寄生植物や菌従属栄養植物(holomycotroph)は、葉緑体やミトコンドリアの遺伝子が大きく変化していたり、失われていたりするため、核遺伝子の回収率も低くなります(Zuntini et al., 2024)。論文は、このような植物は、過去に細胞小器官のDNAの解析だけで置かれてきたために、位置づけが不十分だったと述べています。しかも、これらの群では、長枝誘引(long-branch attraction)の影響で、ほかの光合成を行う群の関係まで乱れる可能性があります。たとえば Rafflesiaceae と Apodanthaceae について、Cai et al.(2025)は、手法によって位置が変わることを示し、この系統の位置づけは、ILSと長枝誘引が重なる危険な領域にあると指摘しています。APG Vは、この群について Alzate et al.(2024)の1000を超える核遺伝子座の解析に基づく結果を採用しましたが、位置が確定したわけではありません。特異な生物学的特徴を持つ群ほど、系統の推定が不確かになり、そのうえで、分類の判断が下されるという構造です。
第四に、不確実性を示す手段が、体系の安定を守るために使われている面があります。APG Vの論文は、特にコア真正双子葉類での目の配置は、今後変わりやすいと述べています。論文は、科と目の構成は、非単系統が示されない限り変えないと述べる一方で、目の相互の配置や、目の内部での科の関係は、新しい証拠によって変わりうるとしています。つまり、変更されにくい部分(科・目の構成)と、変更されやすい部分(上位の配置と科どうしの関係)を、分けて扱っています。これは、利用者の混乱を最小限にするためには適切ですが、その結果、分類のうえで「確定した部分」として見える範囲が、確からしさそのものよりも、運用の都合で決められている面があることになります。
既存研究の統合と証拠の評価
APG Vは、新しいデータを解析した論文ではなく、既に発表された研究を統合した総説(Review)です。論文は、APG Vが「公表された研究の要約」であり、特定の解析や解析の組み合わせに基づくものではなく、Fig. 1 の系統樹も、特定のDNAデータセットの解析結果ではないと明記しています(Angiosperm Phylogeny Group, 2026)。第1ページでも触れたとおり、これは誠実な記述です。同時に、評価の方法についての課題を残します。
第一に、どの研究を、どの重みで採用するかは、論文のなかで読み取るしかありません。たとえば、核遺伝子の系統樹を葉緑体の系統樹よりも優先するという方針は明示されていますが、複数の核の研究が食い違う場合にどれを優先するかは、事例ごとの記述に委ねられています。1000種類以上の植物のトランスクリプトーム(One Thousand Plant Transcriptomes Initiative, 2019)、標的配列捕獲による解析(Zuntini et al., 2024)、ミトコンドリア遺伝子の解析(Lin et al., 2025)といった、データの種類も規模も異なる研究を、同じ尺度で比較する手順は、定式化されていません。
第二に、複数の研究が同じ結果を示していても、それが独立した証拠が複数あることを意味するとは限りません。研究が使うデータセット、分類群のサンプリング、遺伝子の選び方が重なっていれば、一致は、独立した裏づけではなく、データの共通性の反映かもしれません。論文は、APG Vの系統樹が、主要な核の研究に基づいていると述べていますが(One Thousand Plant Transcriptomes Initiative, 2019; Stull et al., 2020; Yang et al., 2020; Xiang et al., 2024; Zuntini et al., 2024)、これらの研究どうしが、どこまで独立しているかは、利用者が自分で調べなくてはなりません。
第三に、再現性の問題です。論文は、再現性、すなわち、同じデータから異なる著者が同じ分類群の範囲に到達できることが望ましいとしつつ、植物分類の特異な性質のために、これを達成するのは難しいと認めています。最初のAPGも白紙の状態から始まったわけではなく、すべてのAPGは、歴史的な概念と新しい考え方の混合物だったと述べられています(Angiosperm Phylogeny Group, 2026)。したがって、同じ公表データを与えられた別の研究者が、APG Vと同じ分類を再構成できる保証はありません。
第四に、総説であるAPG Vが、後続の研究で「根拠」として引用されるときの問題です。総説は、一次のデータそのものではありません。ところが、「APGに従って」という言い方が一人歩きすれば、総説の結論が、あたかも一次の証拠であるかのように扱われかねません。第1ページで述べた、APGの権威が、属や種のレベルの変更の免罪符になる状況は、この問題の延長にあります。APG Vが、根拠となる研究を明示して整理したことは、利用者がこの問題を避けるうえで、役に立ちます。
参考文献
- Alzate, J. F., González, F. A., & Pabón-Mora, N. (2024). Back together: Over 1000 single-copy nuclear loci and reproductive features support the holoendoparasitic Apodanthaceae as sister to the Rafflesiaceae in the order Malpighiales. Molecular Phylogenetics and Evolution, 201, 108217. https://doi.org/10.1016/j.ympev.2024.108217
- Angiosperm Phylogeny Group. (1998). An ordinal classification for the families of flowering plants. Annals of the Missouri Botanical Garden, 85(4), 531–553. https://doi.org/10.2307/2992015
- Angiosperm Phylogeny Group. (2003). An update of the Angiosperm Phylogeny Group classification for the orders and families of flowering plants: APG II. Botanical Journal of the Linnean Society, 141(4), 399–436. https://doi.org/10.1046/j.1095-8339.2003.t01-1-00158.x
- Angiosperm Phylogeny Group. (2009). An update of the Angiosperm Phylogeny Group classification for the orders and families of flowering plants: APG III. Botanical Journal of the Linnean Society, 161(2), 105–121. https://doi.org/10.1111/j.1095-8339.2009.00996.x
- Angiosperm Phylogeny Group. (2016). An update of the Angiosperm Phylogeny Group classification for the orders and families of flowering plants: APG IV. Botanical Journal of the Linnean Society, 181(1), 1–20. https://doi.org/10.1111/boj.12385
- Angiosperm Phylogeny Group. (2026). Large-scale nuclear and plastid phylogenomic analyses inform an updated Angiosperm Phylogeny Group classification: APG V. Journal of Systematics and Evolution, 64(5), 845–874. https://doi.org/10.1111/jse.70096
- Avise, J. C., & Mitchell, D. (2007). Time to standardize taxonomies. Systematic Biology, 56(1), 130–133. https://doi.org/10.1080/10635150601145365
- Backlund, A., & Bremer, K. (1998). To be or not to be: Principles of classification and monotypic plant families. Taxon, 47(2), 391–400. https://doi.org/10.2307/1223768
- Bruyns, P. V., Oliveira-Neto, M., Melo-de-Pinna, G. F., & Klak, C. (2014). Phylogenetic relationships in the Didiereaceae with special reference to subfamily Portulacarioideae. Taxon, 63(5), 1053–1064. https://doi.org/10.12705/635.36
- Cai, L., Pabón-Mora, N., Alzate, J. F., Liu, L., & Davis, C. C. (2025). The danger zone: The joint trap of incomplete lineage sorting and long-branch attraction in resolving the Gondwanan origin of Rafflesiaceae and Apodanthaceae. American Journal of Botany, 113, e70201. https://doi.org/10.1101/2024.08.07.606681
- Chase, M. W., Reveal, J. L., & Fay, M. F. (2009). A subfamilial classification for the expanded asparagalean families Amaryllidaceae, Asparagaceae and Xanthorrhoeaceae. Botanical Journal of the Linnean Society, 161(2), 132–136. https://doi.org/10.1111/j.1095-8339.2009.00999.x
- Christenhusz, M. J. M., Vorontsova, M. S., Fay, M. F., & Chase, M. W. (2015). Results from an online survey of family delimitation in angiosperms and ferns: Recommendations to the Angiosperm Phylogeny Group for thorny problems in plant classification. Botanical Journal of the Linnean Society, 178(4), 501–528. https://doi.org/10.1111/boj.12285
- Corner, E. J. H. (1981). Angiosperm classification and phylogeny: A criticism. Botanical Journal of the Linnean Society, 82(1), 81–87. https://doi.org/10.1111/j.1095-8339.1981.tb00952.x
- Dahlgren, R. (1975). A system of classification of the angiosperms to be used to demonstrate the distribution of characters. Botaniska Notiser, 128, 119–147.
- Dahlgren, R. M. T., Clifford, H. T., & Yeo, P. F. (1985). The families of the monocotyledons: Structure, evolution, and taxonomy. Springer. https://doi.org/10.1007/978-3-642-61663-1
- Feldberg, K., Hentschel, J., Bombosch, A., Long, D. G., Váňa, J., & Heinrichs, J. (2009). Transfer of Gottschelia grollei, G. patoniae and Scaphophyllum speciosum to Solenostoma based on chloroplast DNA rbcL sequences. Plant Systematics and Evolution, 280(3–4), 243–250. https://doi.org/10.1007/s00606-009-0187-3
- Funk, D. J., & Omland, K. E. (2003). Species-level paraphyly and polyphyly: Frequency, causes, and consequences, with insights from animal mitochondrial DNA. Annual Review of Ecology, Evolution, and Systematics, 34, 397–423. https://doi.org/10.1146/annurev.ecolsys.34.011802.132421
- Gotty, K., & Pillon, Y. (2025). The family classification of the New Caledonian angiosperms has become more stable with the application of the APG system. Cladistics, 41, 463–469. https://doi.org/10.1111/cla.70003
- Helmstetter, A. J., Ezedin, Z., Lirio, E. J., Oliveira, S. M., Chatrou, L. W., Erkens, R. H., Larridon, I., Leempoel, K., Maurin, O., Roy, S., Zuntini, A. R., Baker, W. J., Couvreur, T. L. P., Forest, F., & Sauquet, H. (2025). Towards a phylogenomic classification of Magnoliidae. American Journal of Botany, 112, e16451. https://doi.org/10.1101/2024.01.09.574948
- Judd, W. S., Sanders, R. W., & Donoghue, M. J. (1994). Angiosperm family pairs: Preliminary phylogenetic analyses. Harvard Papers in Botany, 1(5), 1–51.
- Jost, M., Samain, M.-S., Marques, I., Graham, S. W., & Wanke, S. (2021). Discordant phylogenomic placement of Hydnoraceae and Lactoridaceae within Piperales using data from all three genomes. Frontiers in Plant Science, 12, 642598. https://doi.org/10.3389/fpls.2021.642598
- Knowles, L. L., & Carstens, B. C. (2007). Delimiting species without monophyletic gene trees. Systematic Biology, 56(6), 887–895. https://doi.org/10.1080/10635150701701091
- Kraichak, E., Crespo, A., Divakar, P. K., Leavitt, S. D., & Lumbsch, H. T. (2017). A temporal banding approach for consistent taxonomic ranking above the species level. Scientific Reports, 7, 2297. https://doi.org/10.1038/s41598-017-02477-7
- Lin, D., Shao, B., Gao, Z., et al. (2025). Phylogenomics of angiosperms based on mitochondrial genes: Insights into deep node relationships. BMC Biology, 23, 45. https://doi.org/10.1186/s12915-025-02189-9
- Lücking, R. (2019). Stop the abuse of time! Strict temporal banding is not the future of rank-based classifications in fungi (including lichens) and other organisms. Critical Reviews in Plant Sciences, 38, 199–253. https://doi.org/10.1080/07352689.2019.1650517
- Luebert, F., Cecchi, L., Frohlich, M. W., Gottschling, M., Guilliams, C. M., Hasenstab-Lehman, K. E., Hilger, H. H., Miller, J. S., Mittelbach, M., Nazaire, M., Nepi, M., et al. (2016). Familial classification of the Boraginales. Taxon, 65(3), 502–522. https://doi.org/10.12705/653.5
- Mabberley, D. J. (2017). Mabberley’s plant-book (4th ed.). Cambridge University Press.
- Magallón, S., Gómez-Acevedo, S., Sánchez-Reyes, L. L., & Hernández-Hernández, T. (2015). A metacalibrated time-tree documents the early rise of flowering plant phylogenetic diversity. New Phytologist, 207(2), 437–453. https://doi.org/10.1111/nph.13264
- Mallet, J., Besansky, N., & Hahn, M. W. (2016). How reticulated are species? BioEssays, 38(2), 140–149. https://doi.org/10.1002/bies.201500149
- One Thousand Plant Transcriptomes Initiative. (2019). One thousand plant transcriptomes and the phylogenomics of green plants. Nature, 574, 679–685. https://doi.org/10.1038/s41586-019-1693-2
- Stull, G. W., Soltis, P. S., Soltis, D. E., Gitzendanner, M. A., & Smith, S. A. (2020). Nuclear phylogenomic analyses of asterids conflict with plastome trees and support novel relationships among major lineages. American Journal of Botany, 107, 790–805. https://doi.org/10.1002/ajb2.1468
- Valleau, J. (2004). Plant name changes: Good science, angry growers and confused gardeners. Acta Horticulturae, 634, 63–66. https://doi.org/10.17660/actahortic.2004.634.6
- Vences, M., Guayasamin, J. M., Miralles, A., & De La Riva, I. (2013). To name or not to name: Criteria to promote economy of change in supraspecific Linnean classification schemes. Zootaxa, 3636(2), 201–244. https://doi.org/10.11646/zootaxa.3636.2.1
- Wikström, N., Savolainen, V., & Chase, M. W. (2001). Evolution of the angiosperms: Calibrating the family tree. Proceedings of the Royal Society of London, Series B: Biological Sciences, 268, 2211–2220. https://doi.org/10.1098/rspb.2001.1782
- Xiang, Y., Zhang, T., Zhao, Y., et al. (2024). Angiosperm-wide analysis of fruit and ovary evolution aided by a new nuclear phylogeny supports association of the same ovary type with both dry and fleshy fruits. Journal of Integrative Plant Biology, 66, 228–251. https://doi.org/10.1111/jipb.13618
Zuntini, A. R., Carruthers, T., Maurin, O., et al. (2024). Phylogenomics and the rise of the angiosperms. Nature, 629, 843–850. https://doi.org/10.1038/s41586-024-07324-0