APG分類の根本的問題――進化史を一本の系統樹で表せるのか
APG(Angiosperm Phylogeny Group)分類は、被子植物の分類を分子系統学的な証拠に基づいて組み替え、現在では世界的な標準として使われています。しかし、その土台には、進化の歴史は一本の系統樹として描け、その系統樹から入れ子構造の分類体系を作れる、という前提があります。このページでは、その前提がどこまで成り立つのかを、遺伝子系統樹と種系統樹の違い、核ゲノムと色素体ゲノムの不一致、交雑と遺伝子浸透の3つの面から検討します。
結論を先に述べると、問題は次の2点に集約されます。1つ目は、系統の歴史は網目(ネットワーク)になりうるのに、分類は入れ子(ツリー)でしか表せないという構造的な矛盾です。2つ目は、目・科という深い分岐の整理で成功したAPGの方法と権威が、本来はその射程の外にある属や種のレベルにまで、なし崩し的に持ち込まれていることです。
遺伝子系統樹と種系統樹の違い
系統樹には、性質の異なる2種類があります。遺伝子系統樹は、特定のDNA領域(遺伝子座)が親から子へ受け継がれてきた歴史を表します。一方、種系統樹は、種や集団が分かれてきた歴史そのものを表します。両者は一致するとは限りません。ある遺伝子座の系統が分かれた時期は、種が分かれた時期より前になるからです。種が分かれる前の集団には、すでに複数の遺伝子の型(対立遺伝子)が共存しており、その一部が種分化の後も受け継がれます。その結果、遺伝子系統樹の枝分かれの順序が、種の分岐の順序と食い違うことがあります(Pamilo & Nei, 1988; Maddison, 1997; Nichols, 2001)。この現象は不完全系統選別(ILS:incomplete lineage sorting)と呼ばれます。
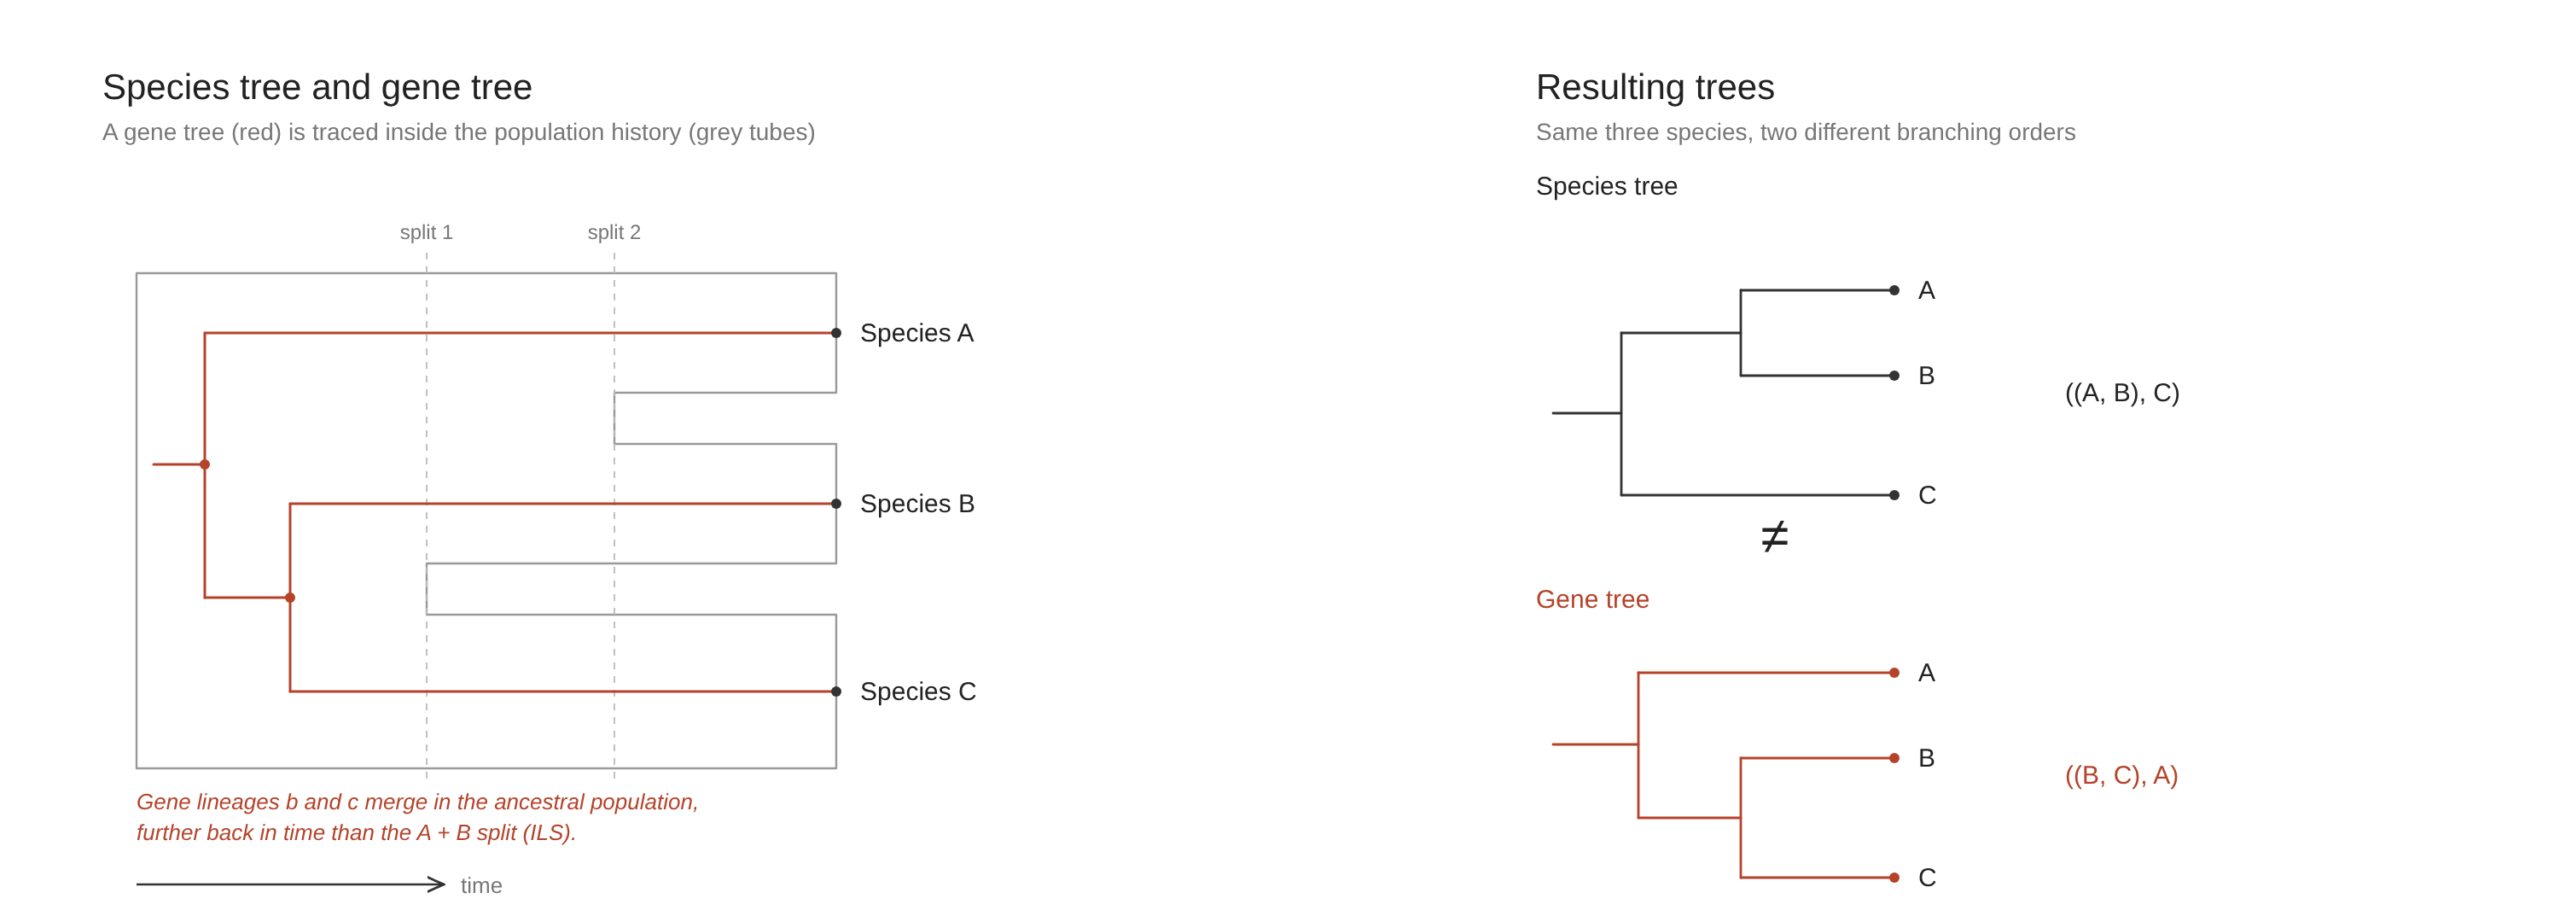
図1 遺伝子系統樹(赤)が種系統樹(灰色の管)と食い違う例。遺伝子Bと遺伝子Cの系統は、種Aと種Bの分岐より前の祖先集団で合流するため、種系統樹は ((A, B), C)、遺伝子系統樹は ((B, C), A) になる(不完全系統選別)。
この違いは、一つの遺伝子の系統樹を種の系統樹とみなす危うさを示しています。Doyle(1992)は、1本の遺伝子系統樹に基づく分子系統学を「一形質の分類学」と呼び、1つの遺伝子から得られる情報の限界を指摘しました。解析手法の面でも、複数の遺伝子を連結して解析する方法は、ILSが強いと誤った系統樹を高い支持値で導くことがあると知られています(Kubatko & Degnan, 2007)。種系統樹を推定するには、遺伝子ごとの系統樹の食い違いを前提にする必要があるため、コアレッセント理論(遺伝子系統樹が種系統樹の中でどう形成されるかを扱う理論)に基づく手法が使われるようになりました(Degnan & Rosenberg, 2009)。
APGの場合、この問題は特に重要です。APG I〜IVは、ほぼ葉緑体ゲノムのDNA領域(最初は rbcL、のちに atpB)の系統解析に依存していました(Angiosperm Phylogeny Group, 2026)。葉緑体ゲノムは組換えがほとんどなく、全体が一つのまとまりとして受け継がれます(Doyle, 2022)。つまり、APGの初期の骨格は、実質的に「ほぼ1本の遺伝子系統樹」だったことになります。APG IV(2016)では、17遺伝子のデータセットのほか、複数の葉緑体遺伝子とミトコンドリア遺伝子の解析結果が統合されましたが(Angiosperm Phylogeny Group, 2016, 2026)、核ゲノムを広く用いた体制になったのは、APG V(2026)からです。
APG Vの論文自身も、APG Vは公表済みの研究の要約であり、その系統樹(Fig. 1)は特定のDNAデータセットを解析した結果ではないと述べています(Angiosperm Phylogeny Group, 2026)。したがって、APG Vの系統樹は、種系統樹を直接推定したものではなく、異なる種類の解析結果を整理した「概観図」だと理解する必要があります。
遺伝子ごとに異なる進化履歴
遺伝子系統樹どうしが食い違う原因は、ILSだけではありません。主なものを挙げると、遺伝子重複とパラログ(重複によって生じた別の遺伝子)の取り違え、交雑や遺伝子浸透による別系統の遺伝子の流入、水平伝播、そして系統樹の推定そのものの誤差があります(Wendel & Doyle, 1998; Steenwyk et al., 2023)。ゲノムの中でも、遺伝子流動が頻繁に起こる領域と、ほとんど起こらない領域があり、同じ種のなかでも遺伝子によって歴史が違うことは珍しくありません。
APG Vの論文は、この問題を認めています。ノイズ、推定の誤差、パラログが不一致の一因であることを前提にしつつも、ILS、交雑や遺伝子浸透による遺伝子流動、進化速度の不均一といった生物学的な原因の存在を支持する証拠が増えている、と述べています。さらに、古い分岐の不一致の例を一覧表(Table 1)として示しています。たとえば、Malpighiales(ILS、交雑)、Ericales(交雑、異質倍数性、急速な放散)、Caryophyllales(ILS、交雑、倍数性、遺伝子重複)、Amaranthaceae(ILS、急速な系統の多様化)などです(Angiosperm Phylogeny Group, 2026)。Malpighiales については、遺伝子系統樹の推定誤差、ILS、古代の遺伝子流動が重なって、被子植物でもっとも解決が難しい群になっていることが示されています(Cai et al., 2021)。
ここで重要なのは、遺伝子ごとの履歴の違いが、分類を決める出発点そのものを揺るがすという点です。どの遺伝子を、いくつ使うかによって、できあがる系統樹が変わりえます。すると、「その系統樹から導かれた分類」が、どの遺伝子の歴史を反映したものなのかが、自明ではなくなります。
核ゲノムと色素体ゲノムの不一致
被子植物では、核ゲノム、葉緑体ゲノム、ミトコンドリアゲノムの3つのゲノムが異なる様式で受け継がれます。葉緑体ゲノムは多くの場合母系遺伝し、核ゲノムは両親から受け継がれます。このため、同じ種を解析しても、核の系統樹と葉緑体の系統樹が食い違うことがあります。
この食い違いは、APGの歴史の中で次第に大きくなってきました。Zeng et al.(2014)は、比較的少数の分類群と遺伝子を用いた核遺伝子の解析で、核と葉緑体の系統樹の不一致の可能性を初めて指摘しました。その後、Sun et al.(2015)がバラ群の初期分岐に深い網状進化の可能性を示し、One Thousand Plant Transcriptomes Initiative(2019)、Stull et al.(2020)、Zuntini et al.(2024)などの大規模な核データによって、不一致が裏づけられました。
APG Vでは、この不一致が分類の変更に直結しました。葉緑体の解析(Li et al., 2021 など)で得られていた配置に沿って、APG IVでは COM clade(Celastrales、Oxalidales、Malpighiales)がマメ群(fabids)に含まれていましたが、核の解析ではCOMの3目は単系統にならず、いずれもアオイ群(malvids)に入りました。その結果、マメ群は窒素固定を行う4目だけに限られ、アオイ群は拡張されました。ほかにも、VitalesとSaxifragalesの位置が葉緑体の結果とは逆になり、CaryophyllalesとSantalalesは位置が定まらないため未配置になりました。葉緑体の解析ではCardiopteridalesがAquifolialesに含まれていましたが、核の解析では別の目として認められました(Angiosperm Phylogeny Group, 2026)。
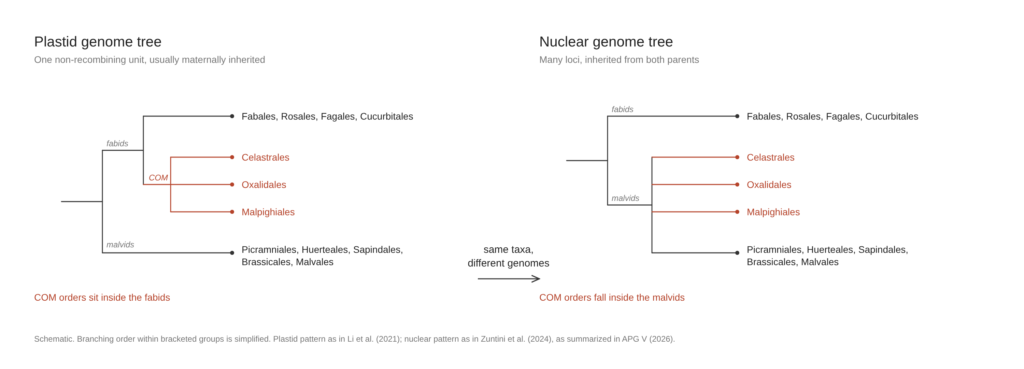
図2 葉緑体ゲノムの系統樹(左)と核ゲノムの系統樹(右)での、COMの3目(Celastrales、Oxalidales、Malpighiales)の位置(模式図)。葉緑体ではマメ群の内部に入り、核ではアオイ群の内部に入る。枝分かれの順序は、括弧内で簡略化している。葉緑体の結果はLi et al.(2021)、核の結果はZuntini et al.(2024)に基づき、APG V(Angiosperm Phylogeny Group, 2026)がまとめたパターンを示す。
APG Vは、この不一致への対処方針として、曖昧さがなく十分に支持された大規模な核ゲノムの系統樹を、葉緑体の結果より優先するとしています。ただし、核遺伝子の系統樹どうしで不一致が大きく、50%を超える遺伝子系統樹で一致する結果が得られない場合には、関係を不確実なものとして扱い、要約系統樹では多分岐(ポリトミー)で示します(Angiosperm Phylogeny Group, 2026)。
この方針は実務的ですが、次の問題を残します。第一に、葉緑体の系統樹が示す母系の歴史は、雑種の親を知るうえで重要な情報であるにもかかわらず(Rieseberg & Soltis, 1991)、分類上は「優先されない結果」として扱われてしまいます。APG Vの論文も、葉緑体の系統樹が雑種の親や集団の系統地理を知るうえで有用だと認めています。第二に、「50%」という基準は、分類を安定して運用するための取り決めであって、系統の歴史そのものから導かれる境界ではありません。第三に、APG IVからAPG Vへの変更が示すように、拠り所とするゲノムを変えるだけで、目の範囲が変わります。分類体系が、どのゲノムを基準にしているかに強く左右されることになります。
交雑・遺伝子浸透とネットワーク型進化
植物では、交雑は例外ではなく、ありふれた現象です。Mallet(2005)は、植物の約25%の種が交雑や遺伝子浸透に関与していると見積もりました。さらに、交雑と倍数化が結びついた異質倍数体は、植物の種分化の主要な経路の一つです(Soltis & Soltis, 2009)。深い分岐のレベルでも、被子植物の初期進化には、古代の交雑(網状進化)の痕跡が数多く見つかっています(Stull et al., 2023)。
APG Vの論文にも、具体例が挙がっています。Ericales は、Cornales の祖先と大きなキク群の祖先の間で、約1億2000万年前に起きた古代の雑種形成の産物とみられています(Stull et al., 2020)。また、Chloranthales とモクレン類の位置が、葉緑体と核の解析で食い違うことについても、古代の雑種形成が原因として考えられています(Guo et al., 2021)。Table 1 には、交雑が関与する群として、Rosids、Caprifoliaceae、Oleaceae、Cornales などが並んでいます(Angiosperm Phylogeny Group, 2026)。
こうした歴史は、枝が分かれるだけの系統樹では表せません。分かれた枝が再び合流する「系統ネットワーク」としてなら、記述できます(Huson & Bryant, 2006)。系統樹が「垂直方向の伝達(親から子へ)」だけを表すのに対し、ネットワークは「水平方向の伝達(交雑・浸透)」も表すことができます。
系統樹から分類体系を構築することの限界
リンネ式の階層分類は、入れ子構造をしています。種は属に含まれ、属は科に含まれ、科は目に含まれます。ある分類群は、ただ一つの上位分類群にだけ属します(Ereshefsky, 2001)。系統分類学では、これに「単系統性」の原則が加わります。すなわち、共通祖先とそのすべての子孫からなる群だけを分類群として認めます(Hennig, 1966; de Queiroz & Gauthier, 1992)。APGもこの原則を第一に掲げています(Angiosperm Phylogeny Group, 1998, 2026)。
この原則は、系統が枝分かれだけで進んできたことを前提にしています。しかし、前の節で見たとおり、現実の系統は網目になりうるため、2つの親から生じた群は、入れ子のどこにも収まりません。片方の親の群に入れれば、もう一方の親の遺伝子が無視され、独立の群として扱えば、系統的な位置が一つに定まりません。このように、入れ子構造の分類は、網目状の系統を、そのまま表現することはできません(Doolittle, 1999 は、同様の問題を生物全体の系統樹について論じています)。
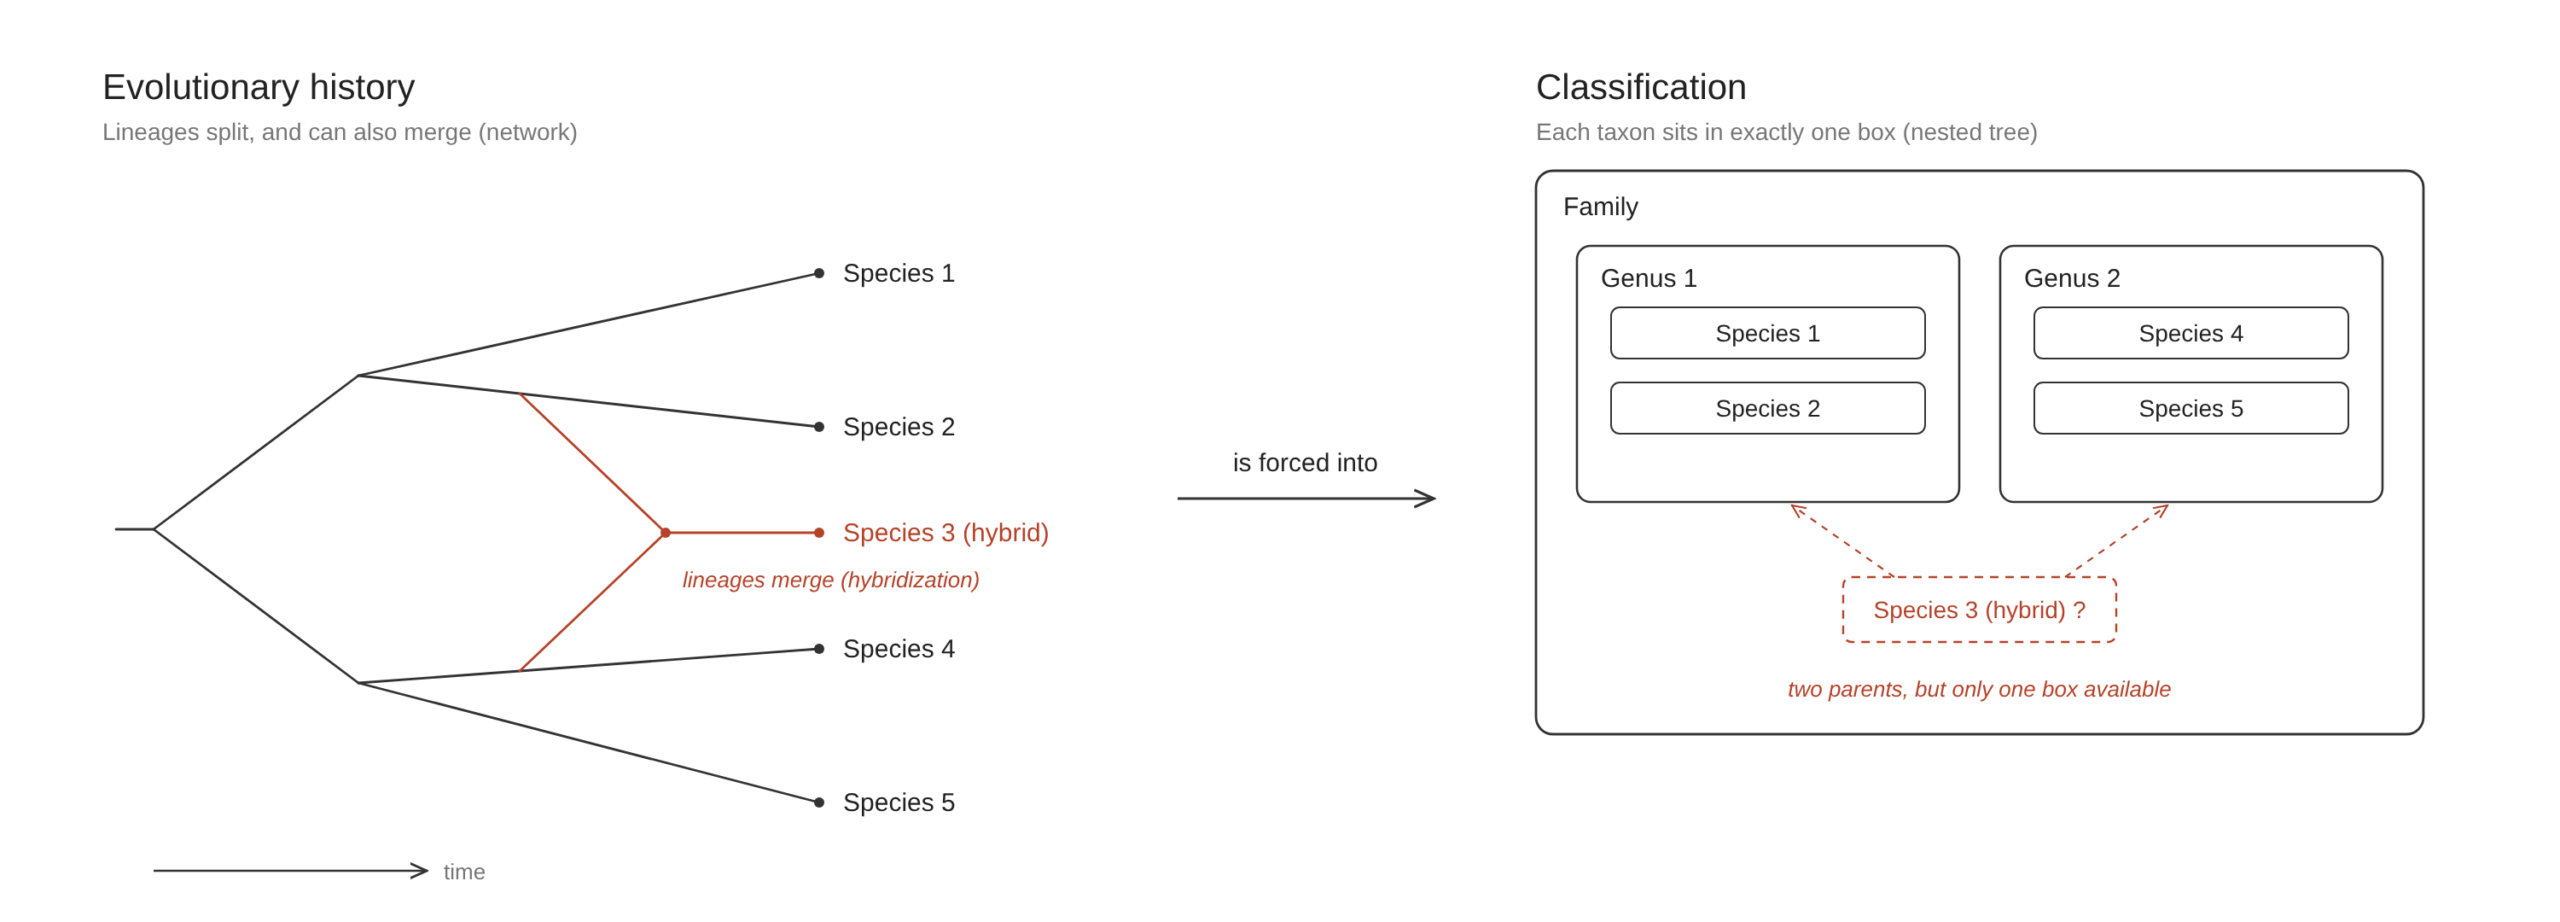
図3 進化の歴史(左)と分類(右)。交雑で生じた種は、親が2つあっても、入れ子の分類では箱を1つしか選べない。
APG Vの論文は、この問題を認識しています。雑種起源の群は、片方の親の群にまとめず、他の科や目と同様に命名したうえで、雑種起源の可能性を注記する方針です(Ericales が例)。また、PhyloCode のような別の命名法も存在するが、APGの範囲を超えると述べています。位置が定まらない群は「未配置」にし、不確実な関係はポリトミーで示します(Angiosperm Phylogeny Group, 2026)。ただし、これらは網目の歴史を表現する工夫ではなく、網目を入れ子の分類に押し込める際に生じる矛盾を、目立たなくするための工夫です。分類はあくまで人間が決める取り決めであり、系統の歴史そのものではないという点を、改めて確認しておく必要があります。
それでも、APGが目や科のレベルで一定の成功を収めてきたことは事実です。論文は、遺伝子系統樹の不一致が影響するのは、APGが扱う分類階級のうち、一部にすぎないと述べています(Angiosperm Phylogeny Group, 2026)。深い分岐の多くは、多数の遺伝子系統樹で同じ結果になるからです。APGが「目と科」を対象としてきたことは、その名称からも明らかです。APG II、III、IVの論文題名は、いずれも「被子植物の目と科のための分類(for the orders and families of flowering plants)」となっています(Angiosperm Phylogeny Group, 2003, 2009, 2016)。APG Vの論文も、APGの目・科と対立するのではなく、それを補う形で、亜科などの科内・目内の分類を別に整備していく方法を示しています(Angiosperm Phylogeny Group, 2026)。
目・科での成功と、属・種への持ち込み
問題は、この「目・科での成功」が、その前提や限界ごと、属や種のレベルに持ち込まれていることです。「APG体系」という名前の権威が独り歩きし、現場の研究者や実務家が、「分子データでこう出たから属を移す」という判断を下すときの免罪符のようになっています。
属や種のレベルは、APGが扱う目・科の深い分岐とは条件が違います。分岐が新しいため、ILSの影響が大きく、交雑や遺伝子浸透も頻繁に起こります(Mallet et al., 2016)。遺伝子系統樹で単系統でも、それが種の単系統を意味するとは限らず、逆に、種が単系統でも遺伝子系統樹では単系統にならないことがあります(Funk & Omland, 2003; Knowles & Carstens, 2007)。そのうえ、使えるデータが遺伝子数本、あるいは葉緑体DNAの限られた領域だけだと、これらの影響を見分けることがほぼできません。葉緑体ゲノムは1つの遺伝単位として受け継がれるうえ、交雑の痕跡を覆い隠してしまうからです(Angiosperm Phylogeny Group, 2026)。
実際の事例を2つ挙げます。いずれも、変更が誤りだったと主張するものではありません。ここで取り上げたいのは、変更の根拠となったデータの範囲と、その扱い方です。
1つ目は、Bruyns et al.(2014)です。Didiereaceae の Portulacarioideae を対象とした分子系統解析で、Ceraria が Portulacaria の内部に入れ子になることが示され、Ceraria の種は Portulacaria に移されました。独立の属として扱われていた群が、別の属の中に吸収された事例です。
2つ目は、Feldberg et al.(2009)です。苔類(Jungermanniales)の Gottschelia と Scaphophyllum の種が、葉緑体DNAの rbcL という単一の領域の解析に基づいて、Solenostoma に移されました。なお、この事例は苔類のものであり、被子植物を対象とするAPGの範囲外です。それでも、「1つの葉緑体遺伝子座の系統樹が、属の境界を動かす根拠として使われる」という考え方は、APG的な分子系統の手法が、分類群を超えて当たり前のものとして広がったことを示しています。
どちらの事例にも共通しているのは、分子系統樹の中で「入れ子になる」ことが、属を移す十分な理由として扱われている点です。しかし、網目状の歴史や、遺伝子ごとの履歴の違いを考慮すれば、ある遺伝子座の系統樹で入れ子になることは、種や属の系統の歴史を直接示すわけではありません。属レベルの分類は、より多くの遺伝子、形態、生態、分布といった複数の証拠を総合して、慎重に判断する必要があります。
参考文献
- Angiosperm Phylogeny Group. (1998). An ordinal classification for the families of flowering plants. Annals of the Missouri Botanical Garden, 85(4), 531–553.
https://doi.org/10.2307/2992015 - Angiosperm Phylogeny Group. (2003). An update of the Angiosperm Phylogeny Group classification for the orders and families of flowering plants: APG II.
Botanical Journal of the Linnean Society, 141(4), 399–436.
https://doi.org/10.1046/j.1095-8339.2003.t01-1-00158.x - Angiosperm Phylogeny Group. (2009). An update of the Angiosperm Phylogeny Group classification for the orders and families of flowering plants: APG III.
Botanical Journal of the Linnean Society, 161(2), 105–121.
https://doi.org/10.1111/j.1095-8339.2009.00996.x - Angiosperm Phylogeny Group. (2016). An update of the Angiosperm Phylogeny Group classification for the orders and families of flowering plants: APG IV. Botanical Journal of the Linnean Society, 181(1), 1–20.
https://doi.org/10.1111/boj.12385 - Angiosperm Phylogeny Group. (2026). Large-scale nuclear and plastid phylogenomic analyses inform an updated Angiosperm Phylogeny Group classification: APG V. Journal of Systematics and Evolution, 64(5), 845–874.
https://doi.org/10.1111/jse.70096 - Bruyns, P. V., Oliveira-Neto, M., Melo-de-Pinna, G. F., & Klak, C. (2014). Phylogenetic relationships in the Didiereaceae with special reference to subfamily Portulacarioideae. Taxon, 63(5), 1053–1064.
https://doi.org/10.12705/635.36 - Cai, L., Xi, Z., Lemmon, E. M., Lemmon, A. R., Mast, A., Buddenhagen, C. E., Liu, L., & Davis, C. C. (2021). The perfect storm: Gene tree estimation error, incomplete lineage sorting, and ancient gene flow explain the most recalcitrant ancient angiosperm clade, Malpighiales. Systematic Biology, 70(3), 491–507.
https://doi.org/10.1093/sysbio/syaa083 - de Queiroz, K., & Gauthier, J. (1992). Phylogenetic taxonomy. Annual Review of Ecology and Systematics, 23, 449–480.
https://doi.org/10.1146/annurev.es.23.110192.002313 - Degnan, J. H., & Rosenberg, N. A. (2009).
Gene tree discordance, phylogenetic inference and the multispecies coalescent. Trends in Ecology & Evolution, 24(6), 332–340.
https://doi.org/10.1016/j.tree.2009.01.009 - Doolittle, W. F. (1999). Phylogenetic classification and the universal tree. Science, 284(5423), 2124–2128.
https://doi.org/10.1126/science.284.5423.2124 - Doyle, J. J. (1992). Gene trees and species trees: Molecular systematics as one-character taxonomy. Systematic Botany, 17(1), 144–163.
https://doi.org/10.2307/2419070 - Doyle, J. J. (2022). Defining coalescent genes: Theory meets practice in organelle phylogenomics. Systematic Biology, 71(2), 476–489.
https://doi.org/10.1093/sysbio/syab053 - Ereshefsky, M. (2001). The poverty of the Linnaean hierarchy: A philosophical study of biological taxonomy. Cambridge University Press.
- Feldberg, K., Hentschel, J., Bombosch, A., Long, D. G., Váňa, J., & Heinrichs, J. (2009). Transfer of Gottschelia grollei, G. patoniae and Scaphophyllum speciosum to Solenostoma based on chloroplast DNA rbcL sequences. Plant Systematics and Evolution, 280(3–4), 243–250.
https://doi.org/10.1007/s00606-009-0187-3 - Funk, D. J., & Omland, K. E. (2003). Species-level paraphyly and polyphyly: Frequency, causes, and consequences, with insights from animal mitochondrial DNA. Annual Review of Ecology, Evolution, and Systematics, 34, 397–423.
https://doi.org/10.1146/annurev.ecolsys.34.011802.132421 - Guo, X., Fang, D., Sahu, S. K., et al. (2021). Chloranthus genome provides insights into the early diversification of angiosperms. Nature Communications, 12, 6930.
https://doi.org/10.1038/s41467-021-26922-4 - Hennig, W. (1966). Phylogenetic systematics. University of Illinois Press.
- Huson, D. H., & Bryant, D. (2006). Application of phylogenetic networks in evolutionary studies.
Molecular Biology and Evolution, 23(2), 254–267.
https://doi.org/10.1093/molbev/msj030 - Knowles, L. L., & Carstens, B. C. (2007). Delimiting species without monophyletic gene trees. Systematic Biology, 56(6), 887–895.
https://doi.org/10.1080/10635150701701091 - Kubatko, L. S., & Degnan, J. H. (2007). Inconsistency of phylogenetic estimates from concatenated data under coalescence. Systematic Biology, 56(1), 17–24.
https://doi.org/10.1080/10635150601146041 - Li, H.-T., Luo, Y., Gan, L., et al. (2021). Plastid phylogenomic insights into relationships of all flowering plant families.
BMC Biology, 19, 232. - Maddison, W. P. (1997). Gene trees in species trees. Systematic Biology, 46(3), 523–536.
https://doi.org/10.1093/sysbio/46.3.523 - Mallet, J. (2005). Hybridization as an invasion of the genome. Trends in Ecology & Evolution, 20(5), 229–237.
https://doi.org/10.1016/j.tree.2005.02.010 - Mallet, J., Besansky, N., & Hahn, M. W. (2016). How reticulated are species? BioEssays, 38(2), 140–149.
https://doi.org/10.1002/bies.201500149 - Nichols, R. (2001). Gene trees and species trees are not the same. Trends in Ecology & Evolution, 16(7), 358–364.
https://doi.org/10.1016/s0169-5347(01)02203-0 - One Thousand Plant Transcriptomes Initiative. (2019). One thousand plant transcriptomes and the phylogenomics of green plants. Nature, 574, 679–685.
https://doi.org/10.1038/s41586-019-1693-2 - Pamilo, P., & Nei, M. (1988). Relationships between gene trees and species trees. Molecular Biology and Evolution, 5(5), 568–583.
https://doi.org/10.1093/oxfordjournals.molbev.a040517 - Rieseberg, L. H., & Soltis, D. E. (1991). Phylogenetic consequences of cytoplasmic gene flow in plants. Evolutionary Trends in Plants, 5, 65–84.
- Soltis, P. S., & Soltis, D. E. (2009). The role of hybridization in plant speciation. Annual Review of Plant Biology, 60, 561–588.
https://doi.org/10.1146/annurev.arplant.043008.092039 - Steenwyk, J. L., Li, Y., Zhou, X., Shen, X.-X., & Rokas, A. (2023). Incongruence in the phylogenomics era. Nature Reviews Genetics, 24, 834–850.
https://doi.org/10.1038/s41576-023-00620-x - Stull, G. W., Pham, K. K., Soltis, P. S., & Soltis, D. E. (2023). Deep reticulation: The long legacy of hybridization in vascular plant evolution. The Plant Journal, 114, 743–766.
https://doi.org/10.1111/tpj.16142 - Stull, G. W., Soltis, P. S., Soltis, D. E., Gitzendanner, M. A., & Smith, S. A. (2020). Nuclear phylogenomic analyses of asterids conflict with plastome trees and support novel relationships among major lineages. American Journal of Botany, 107, 790–805.
https://doi.org/10.1002/ajb2.1468 - Sun, M., Soltis, D. E., Soltis, P. S., Zhu, X., Burleigh, J. G., & Chen, Z. (2015). Deep phylogenetic incongruence in the angiosperm clade Rosidae. Molecular Phylogenetics and Evolution, 83, 156–166.
https://doi.org/10.1016/j.ympev.2014.11.003 - Wendel, J. F., & Doyle, J. J. (1998). Phylogenetic incongruence: Window into genome history and molecular evolution. In D. E. Soltis, P. S. Soltis, & J. J. Doyle (Eds.), Molecular systematics of plants II: DNA sequencing (pp. 265–296). Kluwer Academic Publishers.
https://doi.org/10.1007/978-1-4615-5419-6_10 - Zeng, L., Zhang, Q., Sun, R., Kong, H., Zhang, N., & Ma, H. (2014). Resolution of deep angiosperm phylogeny using conserved nuclear genes and estimates of early divergence times. Nature Communications, 5, 5956.
https://doi.org/10.1038/ncomms5956 - Zuntini, A. R., Carruthers, T., Maurin, O., et al. (2024). Phylogenomics and the rise of the angiosperms. Nature, 629, 843–850.
https://doi.org/10.1038/s41586-024-07320