APG分類の制度的・運用上の問題――分類体系はどのように更新され、どう検証されるのか
APGは、国際植物命名規約(ICN)のような公的な枠組みに基づく組織ではなく、研究者の集まりが論文として公表する分類体系です。APG V の論文も、専門家が目や科について別の分類を提案することを妨げるつもりはないとしています(Angiosperm Phylogeny Group, 2026)。それでも、実際にはAPG体系が世界的な標準として使われているため、その更新の仕組みが、利用者の側に大きな影響を及ぼします。次の順に検討します。分類体系の改訂と学名の安定性、分類変更の根拠と検証可能性、専門家の合意と科学的証拠の関係、判断基準の透明性、APG I~Vの改訂過程と説明責任、そしてAPG Vで顕在化した問題と従来から継承された問題です。
分類体系の改訂と学名の安定性
APGが安定性を重視するのは、利用者が分類学者に限られないからです。APG V の論文は、利用者が農学、解剖学、生化学、保全、発生生物学、生態学、植物誌、園芸、言語学、古植物学、生薬学、生理学など、多くの分野にわたることを挙げています。DNAを分類に取り入れたことが、商業的に重要な植物の名前や科を変え、現実の経済的な負担を生んだことも指摘されています(Valleau, 2004; Mabberley, 2017; Angiosperm Phylogeny Group, 2026)。そのため、すでに単系統とされた科や目は分割しない、科名や目名は単系統でないことが示された場合などを除いて変えない、という原則が置かれています。
この原則の効果は、数字に表れています。ニューカレドニアの被子植物の科の分類を調べた研究では、APG IIIが適用された2012年以降、科のレベルの変更はゼロになりました(Gotty & Pillon, 2025)。論文もこれを引いて、APG IIIより後の体系は、科学論文の外でも安全に使えるようになったという研究者の評価を紹介しています。APGが目・科のレベルで安定した枠組みを提供してきたことは、確かな成果です。
名前の安定については、命名法の仕組みも使われています。科名については、保存名(nomen conservandum)の制度があります。たとえば、Xanthorrhoeaceae は、のちに保存された名前である Asphodelaceae に置き換わりました(Klopper et al., 2018)。APG V でも、Dipsacales の科名が、保存された Viburnaceae に変わりました(Turland et al., 2018)。Frankeniaceae と Tamaricaceae の統合では、先取権のある Frankeniaceae が使われます。科より上の階級では先取権の規定が適用されませんが、論文は、あまり使われていない目名が複数ある場合には、先取権を第一の基準にしたいと述べています(Angiosperm Phylogeny Group, 2026)。
ただし、安定しているのは、APGが責任を持つ範囲の一部に限られます。APG V は、目や科の範囲を変えない一方で、その上のまとまりの扱いを大きく変えました。たとえば、マメ群(fabids)は、APG IVでは COM clade(Celastrales、Oxalidales、Malpighiales)を含んでいましたが、APG V では窒素固定を行う4目だけに限られ、COM の3目はアオイ群(malvids)に入りました。Caryophyllales と Santalales は、位置が定まらないため、superrosids にも superasterids にも含められなくなりました。論文は、こうした位置の不確かさは、APG IVの科や目の範囲には影響しないと述べています(Angiosperm Phylogeny Group, 2026)。しかし、「マメ群」や「アオイ群」といった名前は、教科書や論文で広く使われており、同じ名前が、指す範囲を変えたことになります。これらは階級を持たない非公式の名前で、命名規約による先取権や保存の仕組みは働きません。
さらに、APGが扱わない属・種のレベルでは、学名の安定はAPGの原則の外にあります。第2ページで述べたとおり、種を別の属に移せば、種の学名そのものが変わります。国際取引の規制のように、学名を法的な参照基準としている制度は、分類学の更新とは別の手続きで、使う学名を決めています。たとえば、ワシントン条約(CITES)では、締約国会議が採択した標準的な命名の参照文献に従って、附属書に載る学名を扱います(決議 Conf. 12.11)。APGによる科・目の安定の恩恵は、種の学名を直接使う現場には、そのままは届きません。
分類変更の根拠と検証可能性
APG V は、新たな解析を行った論文ではなく、公表された研究の要約です。したがって、APG V自体を再解析して確かめる、ということはできません。確かめられるのは、APG V が根拠として挙げた個々の研究です。
この点で、APG V の論文は、追跡しやすい構成になっています。第6節の「問題のある群と変更についての注記」では、個々の変更について、どの研究のどの結果に基づくのかが、番号を付けて説明されています。データの限界も、しばしば明記されています。たとえば、Stixaceae を Resedaceae から分けるかどうかについて、Zuntini et al.(2024)の Stixis の試料は遺伝子の回収率が低いため、5つの葉緑体マーカーと核リボソームのITS領域を用いた、より詳細な Zhao et al.(2015)の研究のほうが信頼できる、と判断しています。Salvadoraceae 周辺の関係についても、Zuntini et al.(2024)のサンプリングは評価に十分ではなかったとしています。Santalales では、Zuntini et al. で分類群の標本数が限られており、以前の結果が再現されなかったことが述べられています(Angiosperm Phylogeny Group, 2026)。
それでも、検証の面では、いくつかの限界が残ります。
第一に、根拠のなかに、未発表の情報が含まれています。論文は、Dobera が Salvadora の姉妹群になることについて、PAFTOL プロジェクトの未発表の解析を、個人的な連絡(O. Maurin, pers. comm.)として挙げています。Poilanedora のDNAが標本から得られていないことも、個人的な連絡(F. Forest, pers. comm.)として記されています。また、著者の貢献の欄には、数名の貢献者が、専門領域に関する情報や、今後公表される研究についての事前の情報を提供したと書かれています(Angiosperm Phylogeny Group, 2026)。読者が確かめられない情報が、判断の材料に含まれているということです。
第二に、記録の残し方の問題があります。APG V が明記した原則は、変更の理由を、論文のなかの注記として説明するものです。しかし、一つ一つの変更について、使われたデータの種類、支持の強さ、適用した規則を、同じ形式の一覧表にして示す仕組みは、論文にはありません。読者は、30あまりの注記を読み比べて、判断の筋道を自分で組み立てることになります。
第三に、これは属や種のレベルで、いっそう重要になります。分類の変更を検証するには、本来、証拠となる標本(ボウチャー標本)、配列データ、アラインメント、解析の設定が公開されていて、別の研究者が再解析できる必要があります。APGの目・科の変更は、広く共有された大規模なデータセットに依存しているため、ある程度の検証が可能です。一方、属の移動の根拠となる研究は、少数の遺伝子と限られた標本に基づいていることが多く、後から検証できるかどうかは、個々の論文のデータ公開の状況に左右されます。
専門家の合意と科学的証拠の関係
APGは、多数の専門家の合意によって分類を決める方式を、分類学に持ち込みました。APG V の論文は、複数の専門家の合意によって分類をつくるという原則が、当時の分類学では新しい考え方であり、それまでの分類は、主に単独の著者によるものだったと述べています。初版(1998)は、多数の著者と広い共同体の意見を取り入れた最初の分類でした(Angiosperm Phylogeny Group, 2026)。
APG V の草稿は、オンライン調査にかけられました。調査には234件の回答があり、ヨーロッパが33%、アジアが26%、南米が23%、北米が13%、オセアニアが3%、アフリカが3%でした。回答者の所属は、大学が62%、植物標本館が32%、植物園が30%、博物館が8%でした。62%の回答者がAPG Vの分類に80%を超えて同意し、14%が50〜80%、7%が50%未満で、17%は意見なしでした。意見の相違が集中したのは、Boraginales と、Gesneriaceae・Calceolariaceae・Peltantheraceae の扱いでした。調査の内容は、補足資料(Data S1)として公開されています(Angiosperm Phylogeny Group, 2026)。
このような調査には意味がありますが、測っているものには限りがあります。調査が測るのは、草稿に対する同意の度合いです。個々の分類が科学的に正しいかどうかではありません。専門家の間で意見が一致することと、証拠が決定的であることは、同じではありません。実際、意見の相違が集中した Boraginales や Gesneriaceae の扱いは、証拠だけでは決まらず、教育の都合や安定性といった判断が大きく働く領域でした(第2ページ参照)。回答者は、オンラインの調査に自発的に応じた人と考えられ、地域や所属の分布にも偏りがあります。回答の割合は、回答者の数を数えたもので、個々の判断への賛否を示すものではありません。
また、合意の方式があっても、APGの原則が優先される場合があります。論文は、専門家が提案した分類を、APGの原則に合わせられないことがあったと認めています。たとえば、Celastrales については、Simmons et al.(2023)が、DNAと形態を合わせた解析に基づいて、Parnassiaceae と Celastraceae の2科を認めることを勧めました。しかし、APG Vは、Celastraceae s.l. がAPG III(2009)以来、一貫して使われてきたという理由で、この提案を採用しませんでした。Boraginales を9科または11科に分ける提案(Luebert et al., 2016)も、1科のまま維持されました。Santalales では、APG IVが、Nickrent et al.(2010)の多数の小さな科を、相互の関係が不明なまま提案されたものとして受け入れなかったことが述べられています(Angiosperm Phylogeny Group, 2026)。つまり、最終的な判断は、専門家からの意見や提案そのものではなく、編者が運用する原則、とくに安定性に基づいて行われています。
さらに、分野が小さいために避けがたいことですが、証拠を評価する人と、その証拠をつくった人が、重なっています。APG V の編者10名のうち、Chase、D. Soltis、P. Soltis、De-Zhu Li の4名は、葉緑体ゲノム全体の解析である Li et al.(2021)の著者です。D. Soltis と P. Soltis は、Sun et al.(2015)、Stull et al.(2020)、Guo et al.(2021)、Zhao et al.(2025)にも名を連ねています。Hong Ma は、Zeng et al.(2014)、Yang et al.(2020)、Zhang et al.(2020)、Xiang et al.(2024)、Zhao et al.(2025)の著者です。Chase は、Lin et al.(2025)の著者でもあります(Angiosperm Phylogeny Group, 2026 の参考文献による)。これは、専門家が限られる分野では自然なことで、不正を意味するわけではありません。ただし、評価の独立性は、それだけ、外部の研究者による検証に支えられる必要があります。たとえば、Rafflesiaceae と Apodanthaceae の位置について、Cai et al.(2025)が、現在の手法やゲノムデータでは明確に解決できない可能性を指摘し、論文がそれを引用していることは、外部の声が取り入れられている例です。
判断基準の透明性
APGの判断基準は、論文のなかでかなり明示されています。単系統性、安定性、小さな科の統合、先取権が、原則として挙げられています。核の系統樹と葉緑体の系統樹が食い違うときの扱いも、「50%を超える遺伝子系統樹で一致する結果が得られない場合は、関係を不確実なものとして扱う」という、数値のある基準として示されています(Angiosperm Phylogeny Group, 2026)。数値で示された基準は、後から別の研究者が適用して確かめられるため、検証の面で優れています。
一方で、基準が明示されていない部分や、基準が事例ごとに異なる形で適用されている部分もあります。
第一に、小さな科を統合する基準です。第2ページで見たとおり、論文自身が、統合をいつ行うかについての一般的な原則は、実際には立てられないと述べています。再現性についても、同じデータから異なる著者が同じ分類群の範囲に到達できることが望ましいが、植物分類の性質上、達成するのは難しいと認めています。
第二に、基準の適用が、事例によって異なって見える場合があります。Caryophyllales の Agdestis と Sarcobatus について、論文は、Agdestis と Sarcobatus が姉妹群で Phytolaccaceae から離れるという結果が、葉緑体の2領域(Schäferhoff et al., 2009)、葉緑体ゲノム全体(Yao et al., 2019)、核DNA(Zuntini et al., 2024)で一貫して得られていることを示しています。そのうえで、Phytolaccaceae に含めるか、Agdestidaceae を認めるかのどちらかを選ぶ必要があり、Sarcobatus を Phytolaccaceae に結びつける明確な共有派生形質がないにもかかわらず、Agdestis が形態的に Phytolaccaceae に無理なく収まることを理由に、前者を選んでいます。また、論文は、この関係が以前のAPGで見落とされていたことを、正直に認めています。さらに、Lophiocarpaceae に Corbichonia を含める扱いは、形態の共有派生形質がないにもかかわらず維持されています。Dioscoreales では、単系統でない可能性の高い科を含むAPG IVの枠組みが維持されました。Hydnoraceae では、第2ページで見たように、遺伝子系統樹と形態を合わせて判断されています。これらはそれぞれに理由が述べられていますが、「どの場合にどの理由が優先されるのか」を、一つの基準として読み取ることはできません。
第三に、先取権の扱いも、科より上の階級では規則ではなく、「望ましい」という方針にとどまります。Columelliaceae の場合、位置が確定して Columelliales が妥当になれば、先取権のある名前を使いたいと述べられています。
第四に、根拠となる研究を、APGの編者自身が書いている場合です。Santalales の Olacaceae の範囲は、Su et al.(2015)の配列を再整列した Cauz-Santos et al.(2026)が、Olacaceae のクレードに83%のブートストラップ値で支持を得たことに基づいています。この論文の著者は、Cauz-Santos、Byng、Chase、Christenhusz の4名で、このうち3名がAPG Vの編者です。核データを用いた Anderson et al.(2025)の結果も、解像度はやや低いものの、同様でした。Balanophoraceae の扱いでも、Cauz-Santos et al.(2026)の最尤法の結果(Santalaceae に含まれる、98%)と、Anderson et al.(2025)の結果(含まれない)が食い違い、論文は、核遺伝子の回収に問題があることを理由に、未配置のままとしています(Angiosperm Phylogeny Group, 2026)。編者自身の研究が、判断の中心的な根拠の一つになることは、小さな分野では避けられません。しかし、利用者が、どの根拠が編者自身のものなのかを、見分けられる形で示されることが望まれます。
こうした点を改善するには、たとえば、変更ごとに、使われたデータの種類(葉緑体、ミトコンドリア、核)、支持の強さ、適用した規則、未発表の情報を使ったかどうか、を一覧表にして示す方法があります。APG V の注記は、すでにその材料をほとんど含んでいます。それを共通の形式にそろえれば、外部の研究者が、判断の筋道を確かめやすくなります。
APG I~Vの改訂過程と説明責任
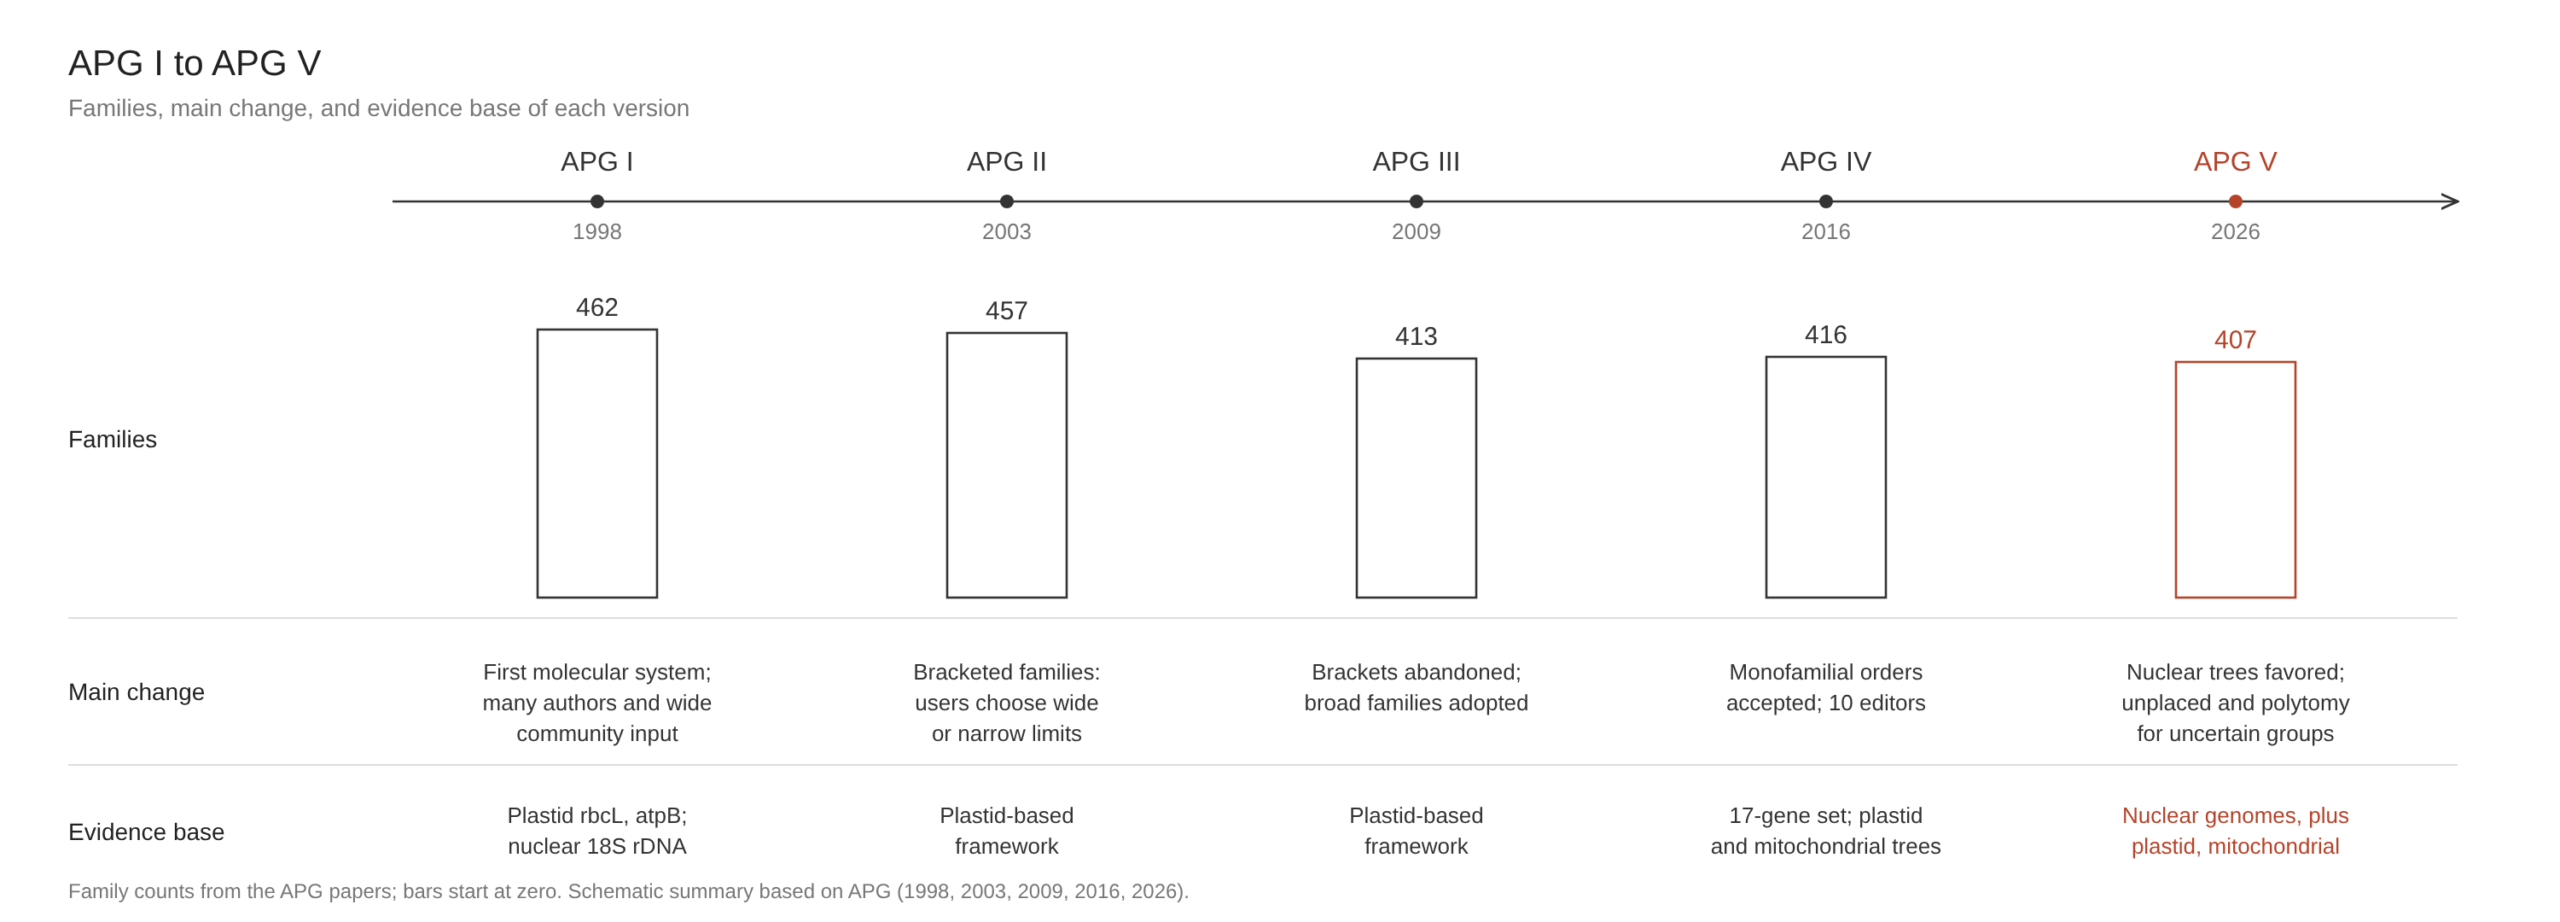
APGは、1998年から2026年まで、5回の改訂を重ねてきました。
| 版 | 発表年 | 科の数 | 主な特徴 |
|---|---|---|---|
| APG I | 1998 | 462(40目) | 初版。多数の著者と共同体の意見を取り入れた |
| APG II | 2003 | 457 | 科の範囲を選べる括弧付きの方式を導入 |
| APG III | 2009 | 413 | 括弧付き方式を廃止。広い範囲の科を採用 |
| APG IV | 2016 | 416(64目) | 単科目を容認。10名の編者 |
| APG V | 2026 | 407(66目) | 根拠を核ゲノムに移した。10名の編者 |
(Angiosperm Phylogeny Group, 1998, 2003, 2009, 2016, 2026)
この過程には、いくつか注目できる点があります。
1つ目は、意思決定の担い手です。初版は、多数の著者と広い共同体の意見を取り入れた最初の分類でした。一方、APG IVとAPG Vは、それぞれ10名の編者が全員で等しく責任を負う形をとっています。しかも、APG IVの編者10名のうち8名(Byng、Chase、Christenhusz、Fay、Mabberley、D. Soltis、P. Soltis、Stevens)は、APG Vの編者でもあります(Angiosperm Phylogeny Group, 2016, 2026)。論文は、共同体の意見が改訂を通じて保たれ、中心となっていると述べています。ただし、決定の中心は少人数の編者にあり、広い参加は、草稿に対するオンライン調査という形に変わっています。
2つ目は、改訂の審査の時間です。APG IVは、2016年1月10日に受付され、1月17日に受理されています。受付から受理まで、1週間でした。APG Vは、2025年12月11日に投稿され、2026年6月4日に受理されました。約半年です(Angiosperm Phylogeny Group, 2016, 2026)。この日数だけで、審査の質を判断することはできません。それでも、APGの改訂が、論文としての審査をどのように受けてきたのかを、利用者が知るための手がかりにはなります。
3つ目は、過去の見落としや判断の修正が、どう扱われてきたかです。APG V は、Agdestis と Sarcobatus の関係が、以前のAPGで見落とされていたことを記しています。また、APG IVが Euphorbiaceae から分けた Peraceae は、APG V では、Zuntini et al.(2024)で Euphorbiaceae の姉妹群になったため、Euphorbiaceae に戻されました。APG Vでは、Apodanthaceae も Cucurbitales から Rafflesiaceae(Malpighiales)に移されています(Angiosperm Phylogeny Group, 2026)。誤りや新しい証拠に応じて修正していくことは、科学として当然のことです。しかし、利用者の側から見れば、一度示された分類が数年で変わる可能性があることを意味します。
4つ目は、説明責任の仕組みです。論文は、編者全員が等しく責任を負うことを明記しています。しかし、改訂の手続き、誤りが見つかった場合の訂正の経路、次の改訂の時期や方法についての規定は、論文では確認できませんでした。APG V は、専門家が別の分類を提案することを妨げない一方で、その場合は、一般の読者が議論をたどれるように、APG Vを参照することを勧めています(Angiosperm Phylogeny Group, 2026)。APG体系が標準としての地位を得ているにもかかわらず、その地位は、公的な承認ではなく、慣行によって支えられています。
APG Vで顕在化した問題と従来から継承された問題
ここまで見てきた問題を、APG Vで新たに目立ってきたものと、以前のAPGから受け継がれてきたものに分けると、次のようになります。
| 区分 | 問題 | 具体例 |
|---|---|---|
| 顕在化 | 根拠ゲノムの転換による上位群の再定義 | COM clade の解体、fabids と malvids の再定義、Vitales と Saxifragales の位置の逆転 |
| 顕在化 | 遺伝子系統樹の不一致の正面からの扱い | Table 1 の不一致の一覧、50%基準によるポリトミー |
| 顕在化 | 未配置・非公式群の増加 | Huaceae、Caryophyllales、Santalales、Columelliaceae、ceratophyllids |
| 顕在化 | 雑種起源の群の命名 | Ericales(雑種起源を注記して命名) |
| 顕在化 | 未発表データや少数の大規模データセットへの依存 | PAFTOL の未発表解析、Zuntini et al.(2024)のサンプリングの限界 |
| 継承 | 階級・範囲が取り決めに依存すること | 科の統合の事例ごとの判断、年代による階級の統一をしない方針 |
| 継承 | 小さな科のペアの未解決 | Ancistrocladaceae–Dioncophyllaceae、Aextoxicaceae–Berberidopsidaceae、Curtisiaceae–Grubbiaceae、Asteropeiaceae–Physenaceae |
| 継承 | 寄生植物・菌従属栄養植物の位置づけ | Dioscoreales、Rafflesiaceae、Balanophoraceae |
| 継承 | 形態の共有派生形質の欠如 | Asparagales、Lamiales の新しい科、Corbichonia |
| 継承 | 位置不明の分類群 | Atrichodendron、Gumillea、Keithia、Poilanedora |
| 継承 | 属・種レベルを規定しないこと | 属の移動の基準、属名の安定性 |
(Angiosperm Phylogeny Group, 2026 に基づいて整理)
顕在化した問題の多くは、APG V が分類の根拠を、葉緑体から核ゲノムに移したことの帰結です。核ゲノムの大規模なデータによって、葉緑体の系統樹が隠してきた不一致が見えるようになり、それまで当たり前だった上位の群の関係が、一つずつ組み替えられました。ただし、論文が繰り返し述べているように、その影響は目や科の範囲にはほとんど及ばず、変わったのは、その上の非公式のまとまりと、目の相互の配置でした。このことは、APGの成功が、目・科という階級に支えられていることを、改めて示しています。
継承された問題は、APGの仕組みそのものに由来します。小さな科のペアが、「共有する形質がない」と判断されながら、さらなる研究が必要だとして残されていること、寄生植物や菌従属栄養植物が、データの条件のために位置を決めにくいこと、新しく認められた科に形態の共有派生形質が見つからないことは、APG IVの時点から、あるいはそれ以前から続いてきました。
そして、最後の継承された問題が、APGが属や種のレベルを規定しないことです。これは、APGの欠陥ではありません。APGは目と科のための分類であり、論文もそのように位置づけています。しかし、APG体系の名前の権威が、その外側の属や種のレベルの変更に使われる状況は、APG V でも変わっていません。APG V が、目・科の変更を、核の大規模なデータに基づいて行った方法は、APGの射程の内側では妥当です。同じ方法を、少数の遺伝子や限られた葉緑体領域に基づく属の移動に当てはめることはできない、というのが、このシリーズ全体を通じた論点です。
こうした問題を踏まえると、「APGによれば」という言い方を目にしたときに、確認しておくとよい点が見えてきます。それは、どの階級の話か(目・科か、属・種か)、根拠が核のデータか葉緑体のデータか、サンプリングが十分か、形態の裏づけがあるか、そして根拠の一次の論文はどれか、ということです。APGは、目と科の整理において、強い成果を上げてきました。その成果を正しく使うために、APGの射程と、その外側にある判断の違いを、区別して読むことが大切です。
参考文献
- Anderson, B., Edlund, M., James, S., Lepschi, B., Nickrent, D., Sultan, A., Tate, J., & Petersen, G. (2025). Evolutionary relationships in Santalales inferred using target capture with Angiosperms353, focusing on Australasian Santalaceae sensu lato. Australian Systematic Botany, 38, SB24026. https://doi.org/10.1071/sb24026
- Angiosperm Phylogeny Group. (1998). An ordinal classification for the families of flowering plants. Annals of the Missouri Botanical Garden, 85(4), 531–553. https://doi.org/10.2307/2992015
- Angiosperm Phylogeny Group. (2003). An update of the Angiosperm Phylogeny Group classification for the orders and families of flowering plants: APG II. Botanical Journal of the Linnean Society, 141(4), 399–436. https://doi.org/10.1046/j.1095-8339.2003.t01-1-00158.x
- Angiosperm Phylogeny Group. (2009). An update of the Angiosperm Phylogeny Group classification for the orders and families of flowering plants: APG III. Botanical Journal of the Linnean Society, 161(2), 105–121. https://doi.org/10.1111/j.1095-8339.2009.00996.x
- Angiosperm Phylogeny Group. (2016). An update of the Angiosperm Phylogeny Group classification for the orders and families of flowering plants: APG IV. Botanical Journal of the Linnean Society, 181(1), 1–20. https://doi.org/10.1111/boj.12385
- Angiosperm Phylogeny Group. (2026). Large-scale nuclear and plastid phylogenomic analyses inform an updated Angiosperm Phylogeny Group classification: APG V. Journal of Systematics and Evolution, 64(5), 845–874. https://doi.org/10.1111/jse.70096
- Cai, L., Pabón-Mora, N., Alzate, J. F., Liu, L., & Davis, C. C. (2025). The danger zone: The joint trap of incomplete lineage sorting and long-branch attraction in resolving the Gondwanan origin of Rafflesiaceae and Apodanthaceae. American Journal of Botany, 113, e70201. https://doi.org/10.1101/2024.08.07.606681
- Cauz-Santos, L. A., Byng, J. W., Chase, M. W., & Christenhusz, M. J. M. (2026). Puzzling parasitic plants: Phylogenetics and classification of Santalales revisited. Phytotaxa, 765, 18–34. https://doi.org/10.11646/phytotaxa.765.1.2
- Gotty, K., & Pillon, Y. (2025). The family classification of the New Caledonian angiosperms has become more stable with the application of the APG system. Cladistics, 41, 463–469. https://doi.org/10.1111/cla.70003
- Guo, X., Fang, D., Sahu, S. K., et al. (2021). Chloranthus genome provides insights into the early diversification of angiosperms. Nature Communications, 12, 6930. https://doi.org/10.1038/s41467-021-26922-4
- Klopper, R. R., Smith, G. F., & Van Wyk, A. E. (2018). Proposal to conserve the family name Asphodelaceae (Spermatophyta: Magnoliidae: Asparagales). Taxon, 67(2), 402–403. https://doi.org/10.12705/671.18
- Li, H.-T., Luo, Y., Gan, L., et al. (2021). Plastid phylogenomic insights into relationships of all flowering plant families. BMC Biology, 19, 232. https://doi.org/10.1186/s12915-021-01166-2
- Lin, D., Shao, B., Gao, Z., et al. (2025). Phylogenomics of angiosperms based on mitochondrial genes: Insights into deep node relationships. BMC Biology, 23, 45. https://doi.org/10.1186/s12915-025-02189-9
- Luebert, F., Cecchi, L., Frohlich, M. W., et al. (2016). Familial classification of the Boraginales. Taxon, 65(3), 502–522. https://doi.org/10.12705/653.5
- Mabberley, D. J. (2017). Mabberley’s plant-book (4th ed.). Cambridge University Press.
- Nickrent, D. L., Malécot, V., Vidal-Russell, R., & Der, J. P. (2010). A revised classification of Santalales. Taxon, 59(2), 538–558. https://doi.org/10.1002/tax.592019
- Schäferhoff, B., Müller, K. F., & Borsch, T. (2009). Caryophyllales phylogenetics: Disentangling Phytolaccaceae and Molluginaceae and description of Microteaceae as a new isolated family. Willdenowia, 39(2), 209–228. https://doi.org/10.3372/wi.39.39201
- Simmons, M. P., Lombardi, J. A., & Biral, L. (2023). Classification of the Celastrales based on integration of genomic, morphological, and Sanger-sequence characters. Systematic Botany, 48(2), 283–299. https://doi.org/10.1600/036364423×16847773873134
- Stull, G. W., Soltis, P. S., Soltis, D. E., Gitzendanner, M. A., & Smith, S. A. (2020). Nuclear phylogenomic analyses of asterids conflict with plastome trees and support novel relationships among major lineages. American Journal of Botany, 107, 790–805. https://doi.org/10.1002/ajb2.1468
- Su, H.-J., Hu, J.-M., Anderson, F. E., Der, J. P., & Nickrent, D. L. (2015). Phylogenetic relationships of Santalales with insights into the origins of holoparasitic Balanophoraceae. Taxon, 64(3), 491–506. https://doi.org/10.12705/643.2
- Sun, M., Soltis, D. E., Soltis, P. S., Zhu, X., Burleigh, J. G., & Chen, Z. (2015). Deep phylogenetic incongruence in the angiosperm clade Rosidae. Molecular Phylogenetics and Evolution, 83, 156–166. https://doi.org/10.1016/j.ympev.2014.11.003
- Turland, N. J., Wiersema, J. H., Barrie, F. R., et al. (2018). International Code of Nomenclature for algae, fungi, and plants (Shenzhen Code). Regnum Vegetabile 159. Koeltz Botanical Books. https://doi.org/10.12705/Code.2018
- Valleau, J. (2004). Plant name changes: Good science, angry growers and confused gardeners. Acta Horticulturae, 634, 63–66. https://doi.org/10.17660/actahortic.2004.634.6
- Xiang, Y., Zhang, T., Zhao, Y., et al. (2024). Angiosperm-wide analysis of fruit and ovary evolution aided by a new nuclear phylogeny supports association of the same ovary type with both dry and fleshy fruits. Journal of Integrative Plant Biology, 66, 228–251. https://doi.org/10.1111/jipb.13618
- Yang, L., Su, D., Chang, X., et al. (2020). Phylogenomic insights into deep phylogeny of angiosperms based on broad nuclear gene sampling. Plant Communications, 1, 100027. https://doi.org/10.1016/j.xplc.2020.100027
- Yao, G., Jin, J.-J., Li, H.-T., et al. (2019). Plastid phylogenomic insights into the evolution of Caryophyllales. Molecular Phylogenetics and Evolution, 134, 74–86. https://doi.org/10.1016/j.ympev.2018.12.023
- Zeng, L., Zhang, Q., Sun, R., Kong, H., Zhang, N., & Ma, H. (2014). Resolution of deep angiosperm phylogeny using conserved nuclear genes and estimates of early divergence times. Nature Communications, 5, 4956. https://doi.org/10.1038/ncomms5956
- Zhang, C., Zhang, T., Luebert, F., et al. (2020). Asterid phylogenomics/phylotranscriptomics uncover morphological evolutionary histories and phylogenetic placement for numerous whole genome duplications. Molecular Biology and Evolution, 37, 3188–3210. https://doi.org/10.1093/molbev/msaa160
- Zhao, Y., Yu, D., Kuo, W., et al. (2025). Nuclear phylogenomics provide evidence to clarify key morphological evolution and whole-genome duplication across rosids. Journal of Integrative Plant Biology, 67, 2704–2730. https://doi.org/10.1111/jipb.13972
- Zuntini, A. R., Carruthers, T., Maurin, O., et al. (2024). Phylogenomics and the rise of the angiosperms. Nature, 629, 843–850. https://doi.org/10.1038/s41586-024-07324-0